Die Sommer werden heißer, die Regenfälle seltener und die Wälder geraten zunehmend unter Stress. Lange Trockenperioden und Extremwetterereignisse wie Hitze, Starkregen und Spätfrost verändern nicht nur das Klima, sondern greifen tief in den Wasserhaushalt der Bäume ein. Besonders in Zentraleuropa nimmt die Häufigkeit und Intensität sommerlicher Trockenperioden zu: ein Drittel der stärksten Dürreereignisse seit 1900 trat in den letzten 15 Jahren auf. Der daraus resultierende Trockenstress äußert sich in frühzeitigem Blattabwurf, reduziertem Wachstum und vermehrter Fruktifikation. Bei anhaltender Belastung kann Trockenstress schließlich zum Absterben des Baumes führen. Angesichts der zunehmenden klimatischen Herausforderungen wird ein zuverlässiges Monitoring des Wasserhaushalts der Bäume immer wichtiger. Zwar liefern Wasserhaushaltsmodelle und Bodenfeuchtemessungen bereits wertvolle Hinweise zur Wasserverfügbarkeit, doch es mangelt an empirisch gemessenen Daten zum tatsächlichen Wasserverbrauch und -bedarf der Bäume. Denn Wasserverfügbarkeit und Wasserverbrauch sind nicht immer deckungsgleich und verschiedene Baumarten reagieren unterschiedlich stark auf Wassermangel. Um die zeitlichen Dynamiken der Transpiration von Baumarten im Feld zu erfassen, führen wir Saftflussmessungen an ausgewählten Standorten des forstlichen Intensivmonitorings in Deutschland durch – in Bayern an den Waldklimastationen. Dadurch entsteht eine verlässliche Datengrundlage, mit der Wasserhaushaltsmodellierungen optimiert werden.
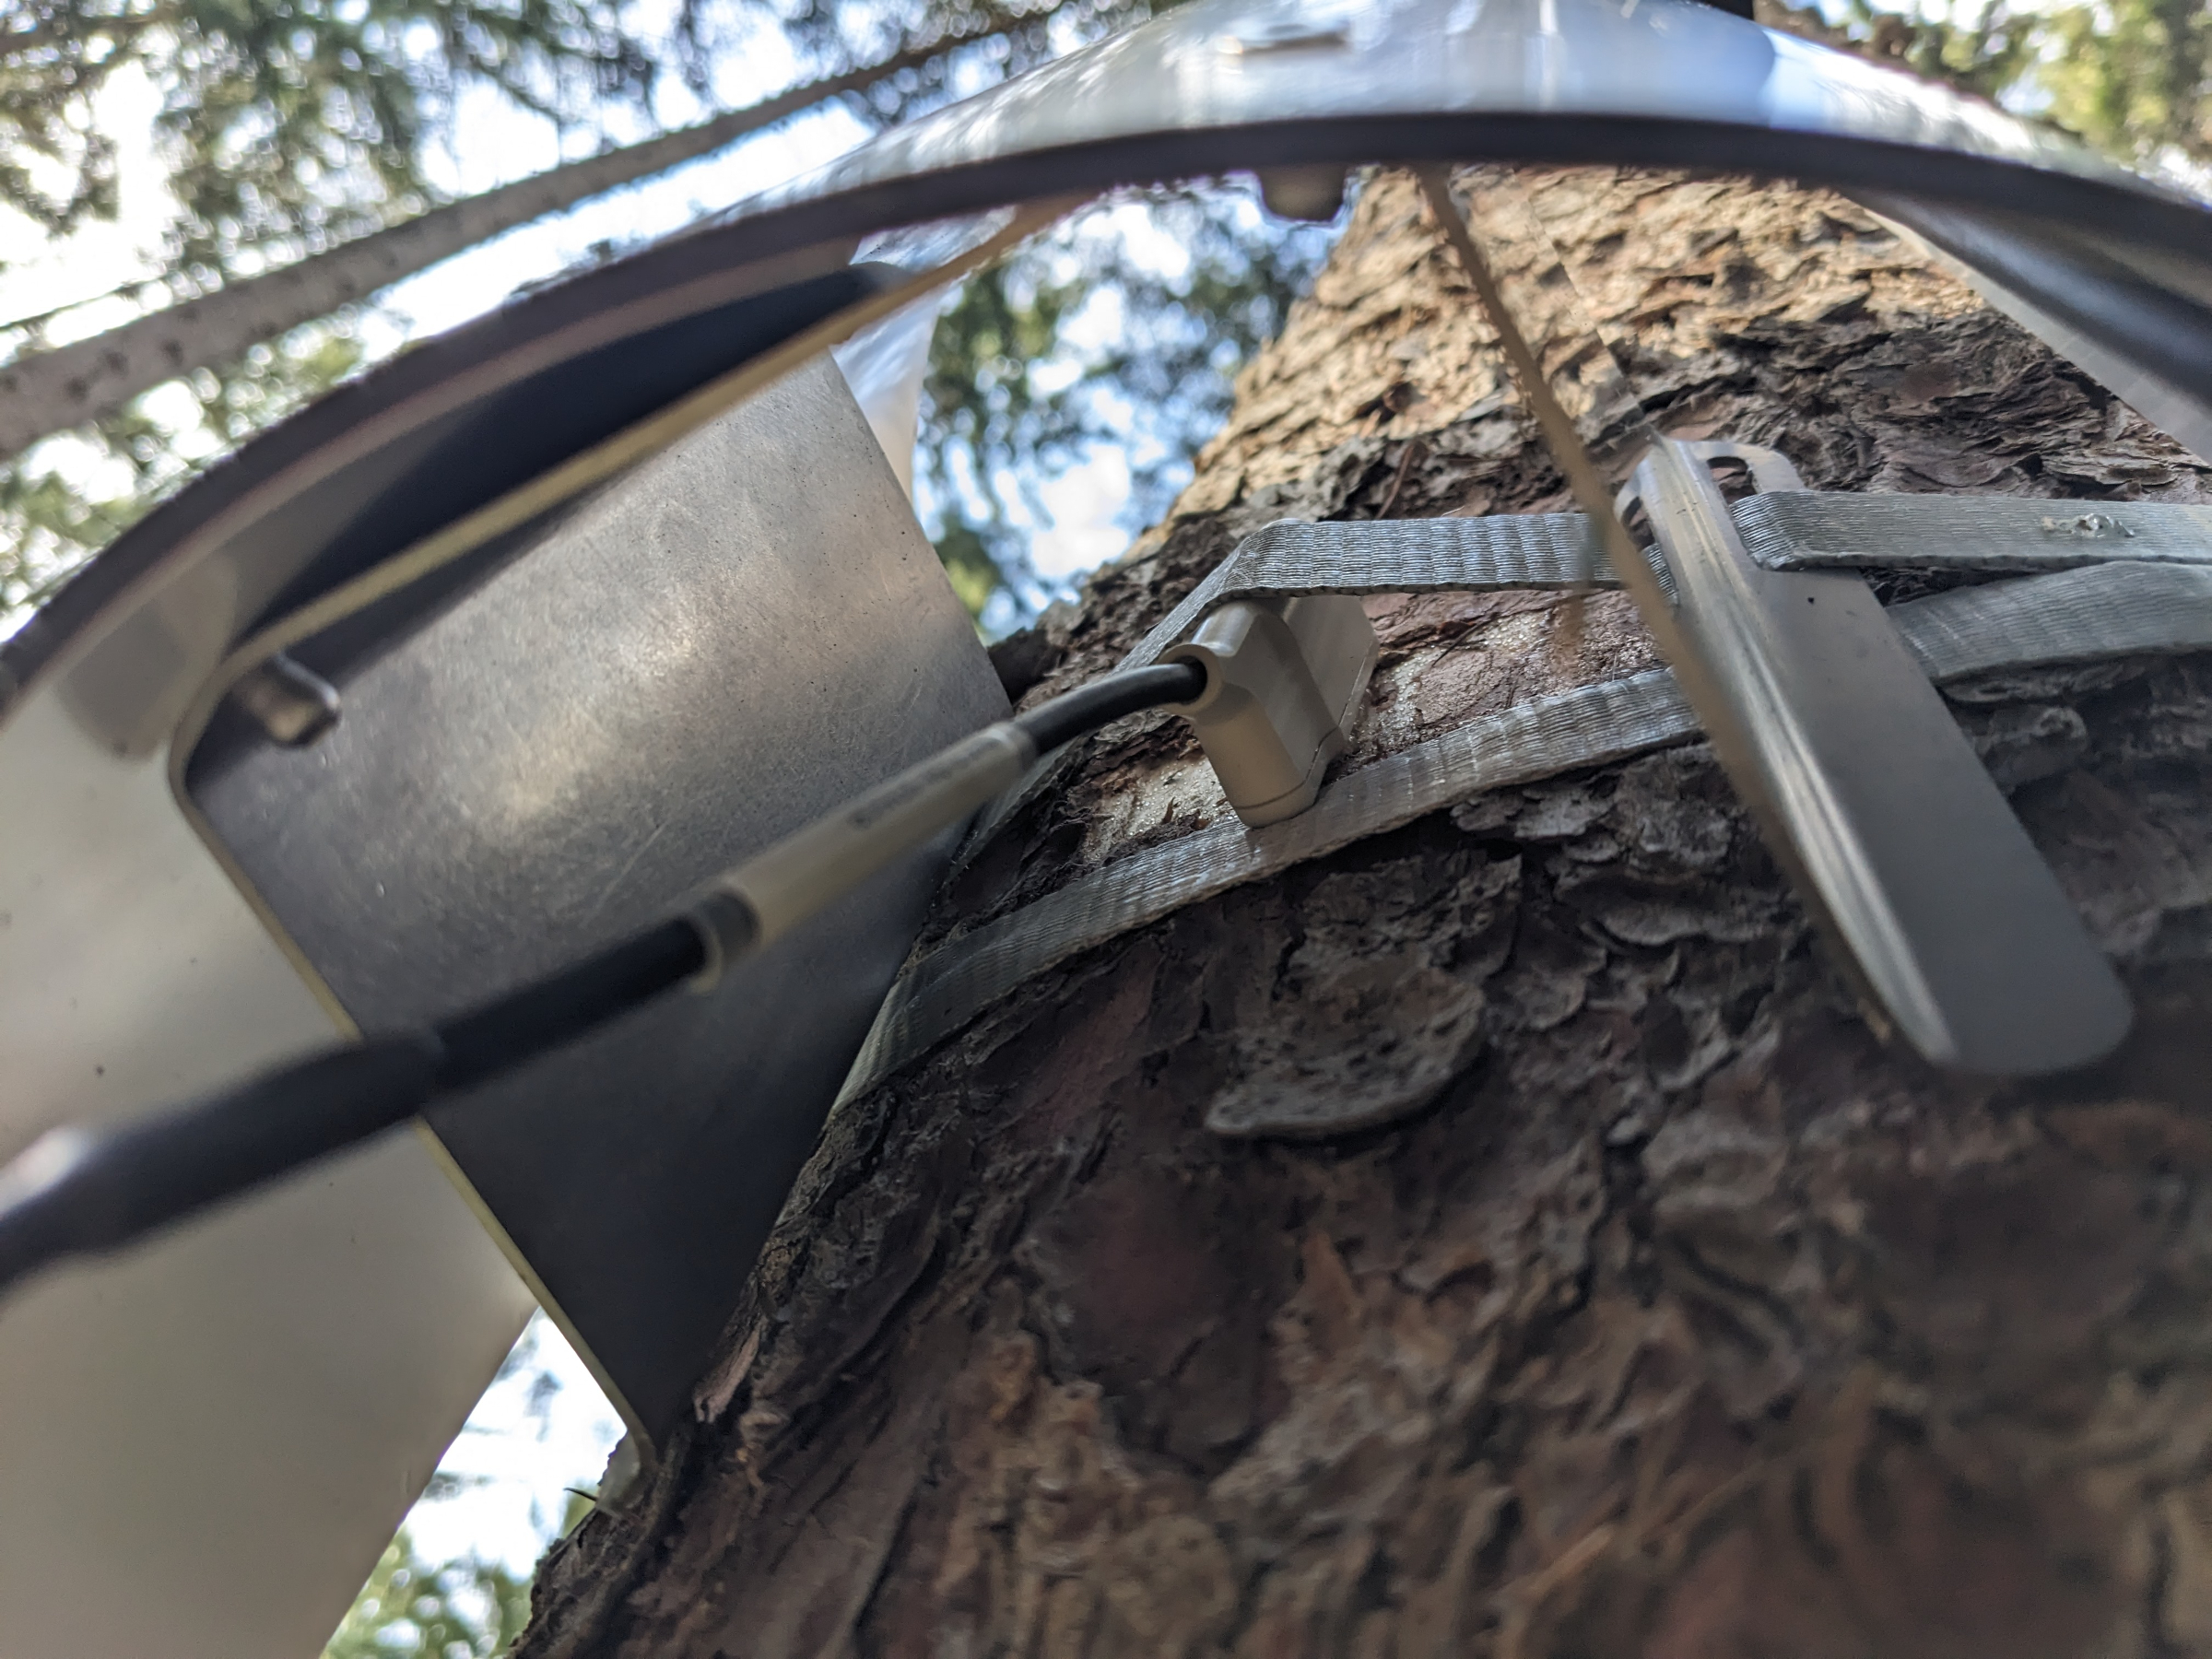
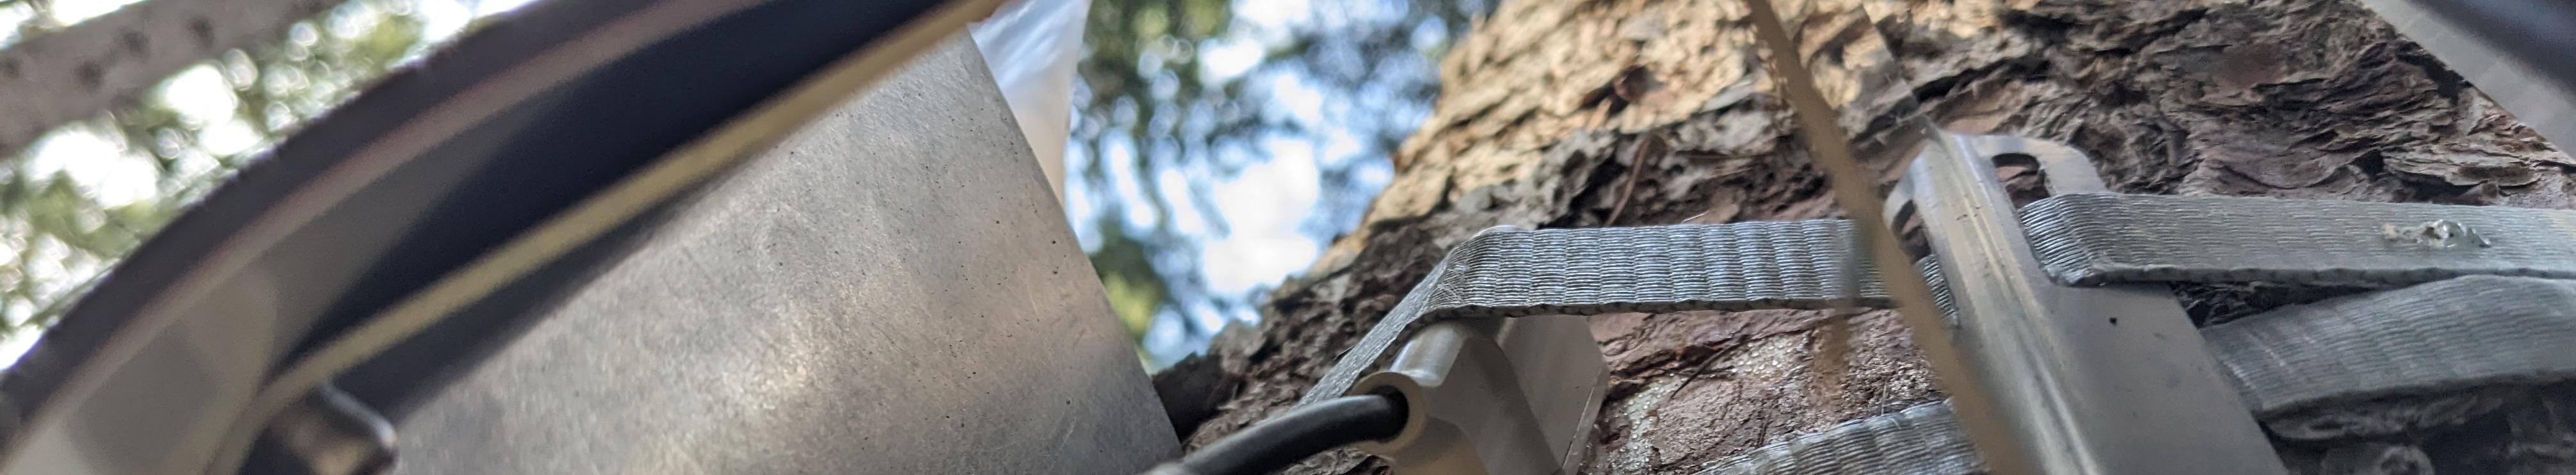
Abb. 1: Ein Saftflusssensor am Baum unter dem Strahlungsschutz. Foto: Stephan Rimmele
Der Baum im Wasserhaushalt des Waldökosystems
Der Wasserhaushalt im Wald umfasst verschiedene eng verknüpfte Prozesse (Abbildung 2). Trifft Regen auf das Kronendach, benetzt er zunächst die Blatt- und Nadeloberflächen, die wie ein temporärer Wasserspeicher wirken. Ein Teil des Wassers verdunstet direkt von der Oberfläche, was auch als Interzeption bezeichnet wird. Mit bis zu 27 m2 Blatt- und Nadeloberfläche pro Quadratmeter Bestandesfläche erreicht der Wald die höchsten Interzeptionsmengen aller Vegetationstypen. Ist der Interzeptionsspeicher gefüllt, fällt das Wasser als Kronentraufe zu Boden oder wird über den Stamm abgeleitet. Auch an der Bodenoberfläche kommt es zur Verdunstung, der sogenannten Evaporation. Der verbleibende Anteil des Niederschlagswassers versickert im Boden und trägt zur Auffüllung des Bodenwasserspeichers bei. Ein Teil davon wird jedoch von den Feinwurzeln der Bäume aufgenommen und durch den Baum bis in die Blätter und Nadeln transportiert. Dort verdunstet das Wasser über die Transpiration und gelangt so wieder in die Atmosphäre. In mitteleuropäischen Wäldern ist die Transpiration der Bäume für rund 70–80 % der gesamten Verdunstung verantwortlich. Sie prägt damit nicht nur die Luftfeuchtigkeit im Wald, sondern auch die Wassermenge, die dem Boden und damit der Grundwasserneubildung entzogen wird.
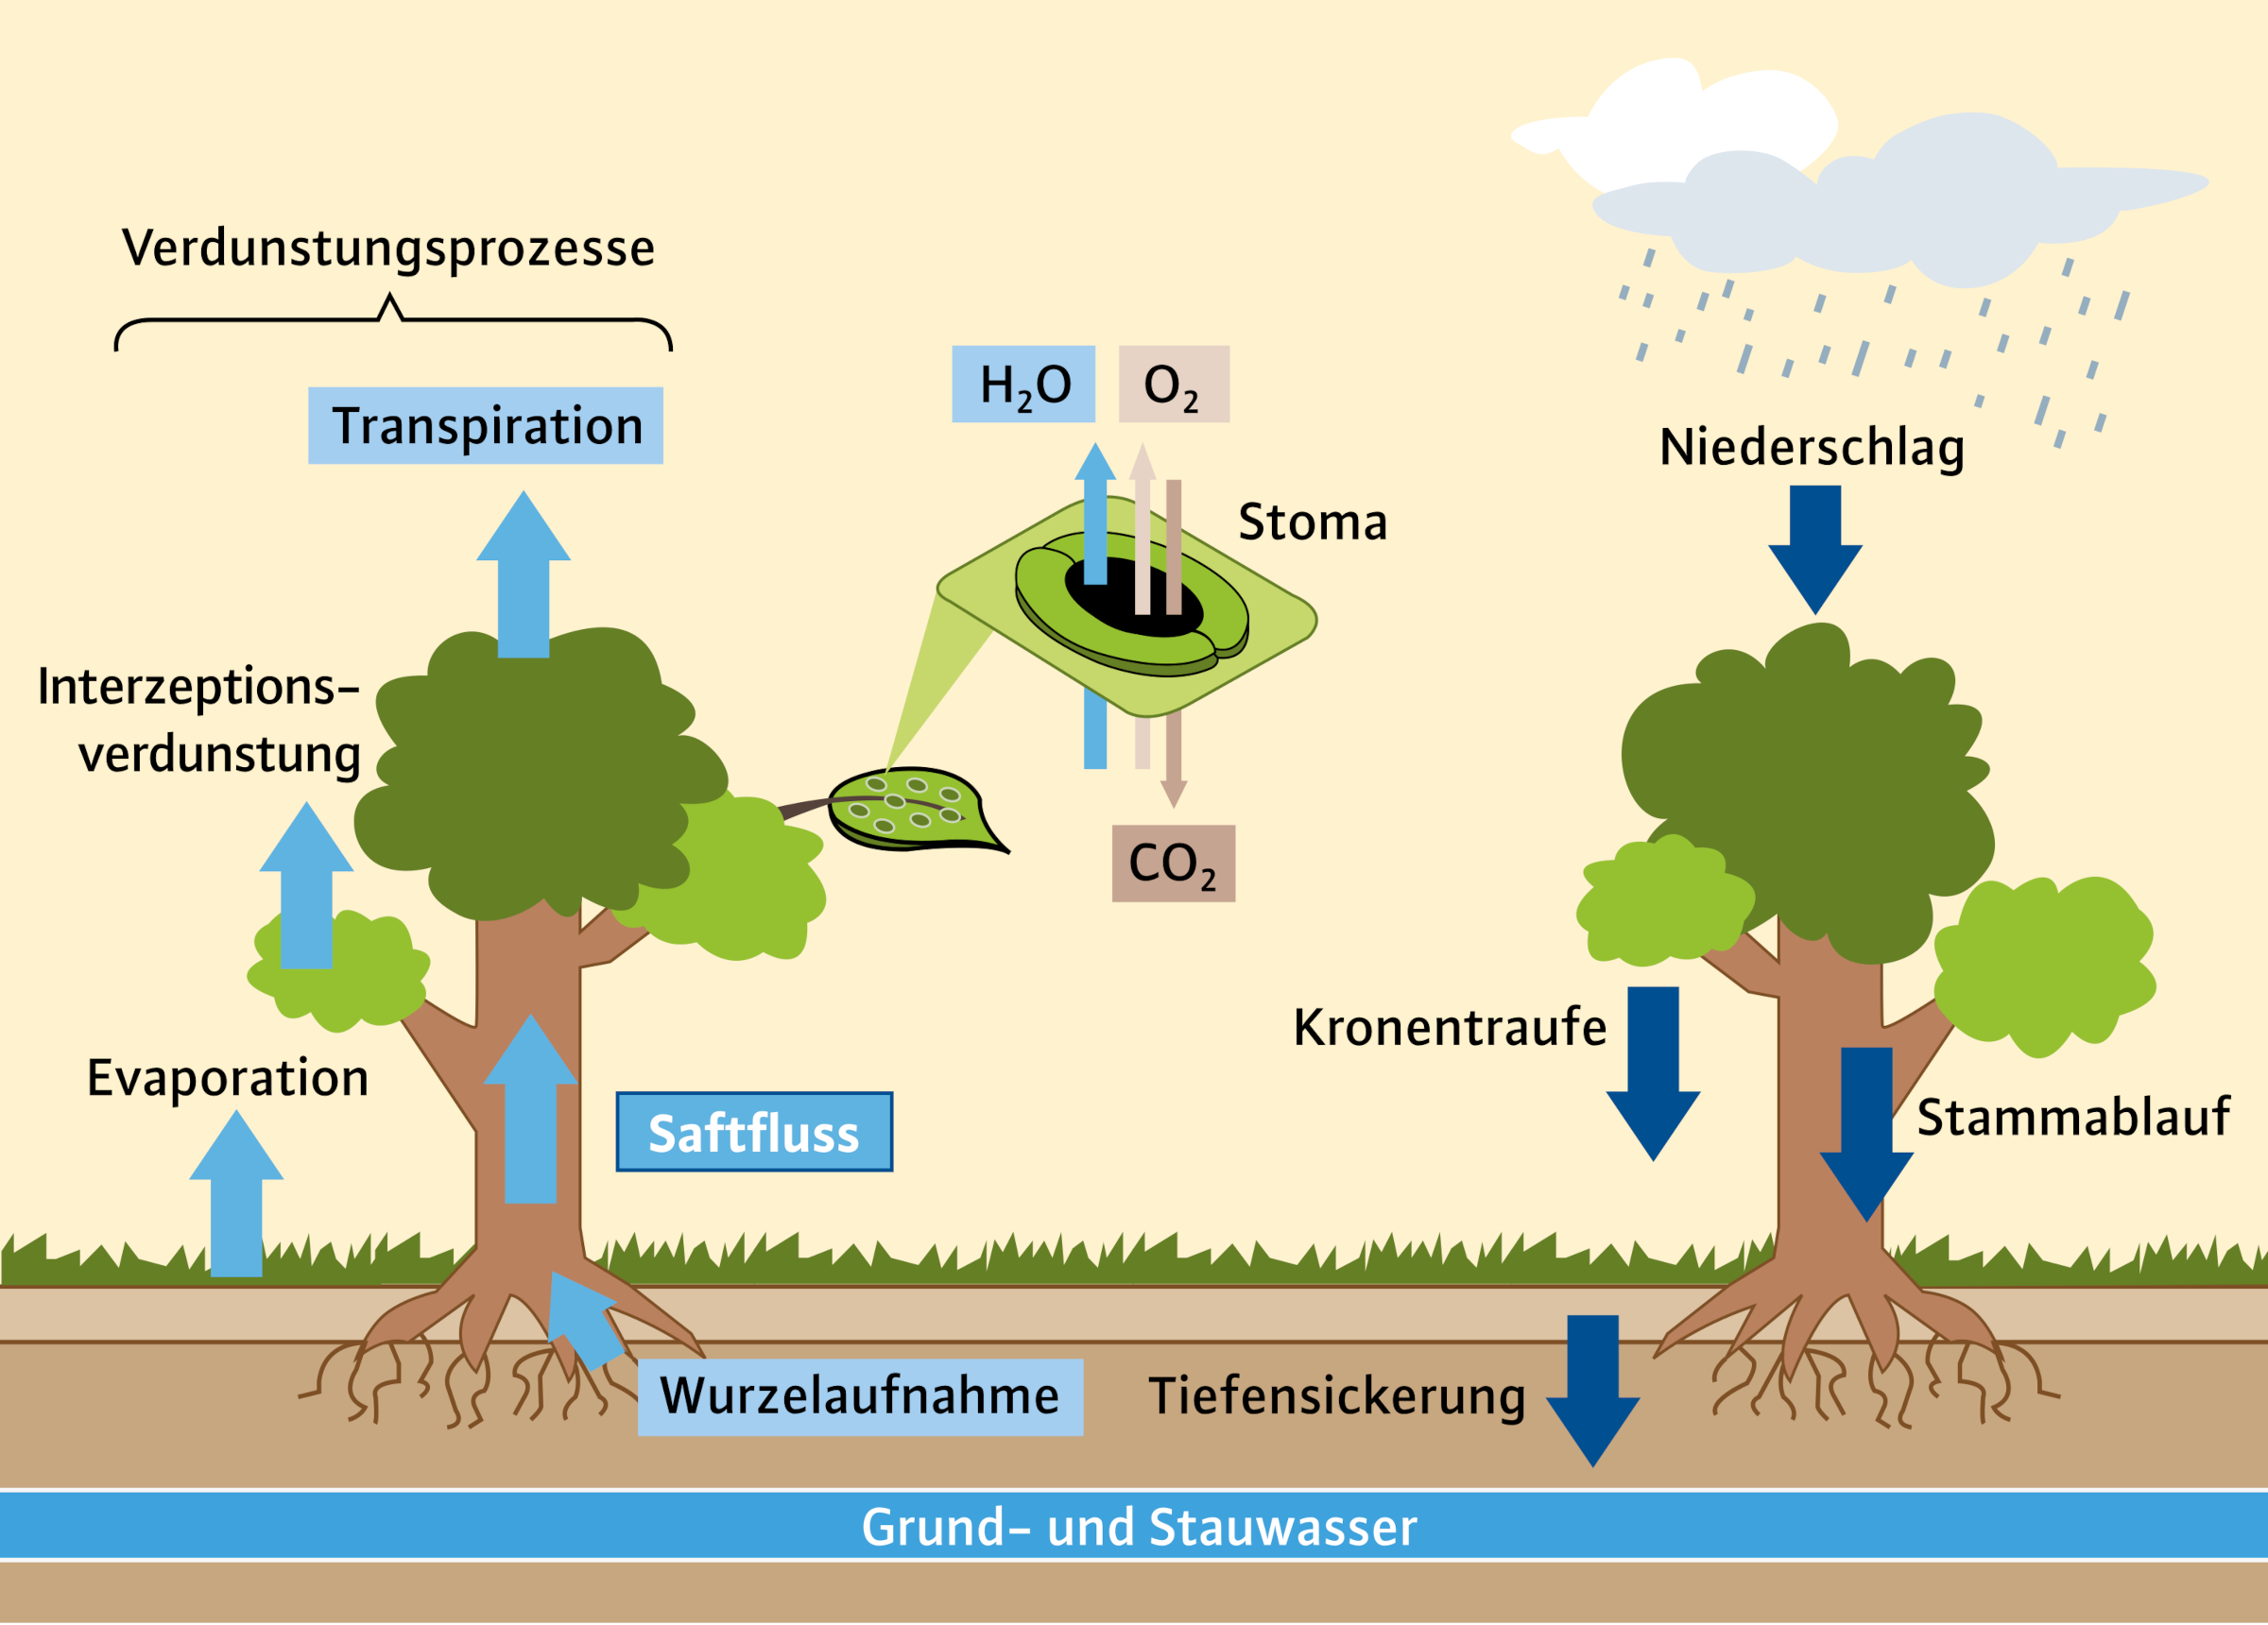
Abb. 2: Im Baum wird Wasser mit dem Saftfluss bis in die Krone transportiert. Dort findet an den Stomata nicht nur die Transpiration, sondern auch der Gasaustausch für die Photosynthese statt.
Im Baum wird das über die Wurzeln aufgenommene Wasser als Saftfluss durch das wasserleitende Gewebe (Xylem) des Splintholzes bis in die Blätter und Nadeln der Krone transportiert. Dort findet die Transpiration statt, wobei hier im Blattinneren das Wasser den Phasenzustand von flüssig zu gasförmig wechselt: Der Wasserdampf tritt über winzige Spaltöffnungen der Blätter und Nadeln, den sogenannten Stomata, in die Atmosphäre aus. Diese Verdunstung verursacht einen Unterdruck im Xylem, der auch als Transpirationssog bezeichnet wird und neues Wasser aus dem Boden nachzieht. Neben der Transpiration findet durch die Stomata auch der Gasaustausch für die Photosynthese (CO2-Aufnahme und O2-Abgabe) statt. Beide Prozesse können durch Schließen der Stomata reduziert bis fast vollständig gestoppt werden, wodurch sich der Baum flexibel an äußere Umwelteinflüsse anpassen kann. Aber auch die Gesamtanzahl an Stomata beeinflusst die Transpirationsrate eines Baumes. Dabei gilt: je mehr Blattoberfläche ein Baum hat, desto mehr Stomata sind für die Verdunstung vorhanden. Abhängig von der Baumart kann die Gesamtblattoberfläche unterschiedlich groß ausfallen. Bisher wurde die Transpiration im forstlichen Umweltmonitoring nicht direkt gemessen, sondern mithilfe von Wasserhaushaltsmodellen abgeschätzt. Diese Modelle wurden anhand gemessener Bestandesniederschläge und Bodenfeuchtewerte sowie durch empirisch abgeleitete Annahmen zu baumphysiologischen und bodenhydrologischen Eigenschaften optimiert. Diesen Ansatz möchten wir nun erweitern: Durch die direkte Messung des Saftflusses, der unmittelbar vom Transpirationssog gesteuert wird, können wir präzise Rückschlüsse auf die tatsächliche Transpiration eines Baumes ziehen.
Das Prinzip der Saftflussmessungen
Saftflussmessungen basieren häufig auf thermometrischen Methoden. Dabei wird gemessen, wie schnell sich ein künstlich erzeugter Wärmeimpuls im Splintholz ausbreitet. Die Geschwindigkeit der Wärmeausbreitung hängt dabei von der Saftflussgeschwindigkeit ab: Je schneller das Wasser durch das Splintholz fließt, desto rascher breitet sich mit ihm der Wärmeimpuls in Fließrichtung aus. Eine Variante für eine solche thermometrische Methode ist die Heat Ratio Method (HRM). Bei dieser Methode werden drei Nadeln horizontal in das Splintholz mit gleichem Abstand zueinander und direkt übereinander entlang der Fließrichtung des Saftstroms positioniert (Abbildung 3). Die mittlere Nadel fungiert als Heiznadel und setzt in zeitlichen Abständen einen Wärmeimpuls frei. Eine Thermistornadel befindet sich jeweils oberhalb und unterhalb der Heiznadel. Diese erfassen die Zeit, die der Wärmeimpuls benötigt, um eine definierte Strecke im Splintholz zu überwinden. Basierend auf den Messungen wird die Saftflussgeschwindigkeit ermittelt. Durch die Wiederholung der Messungen in 15-minütigen Intervallen lassen sich Veränderungen des Wassertransports im Tagesverlauf nachvollziehen.
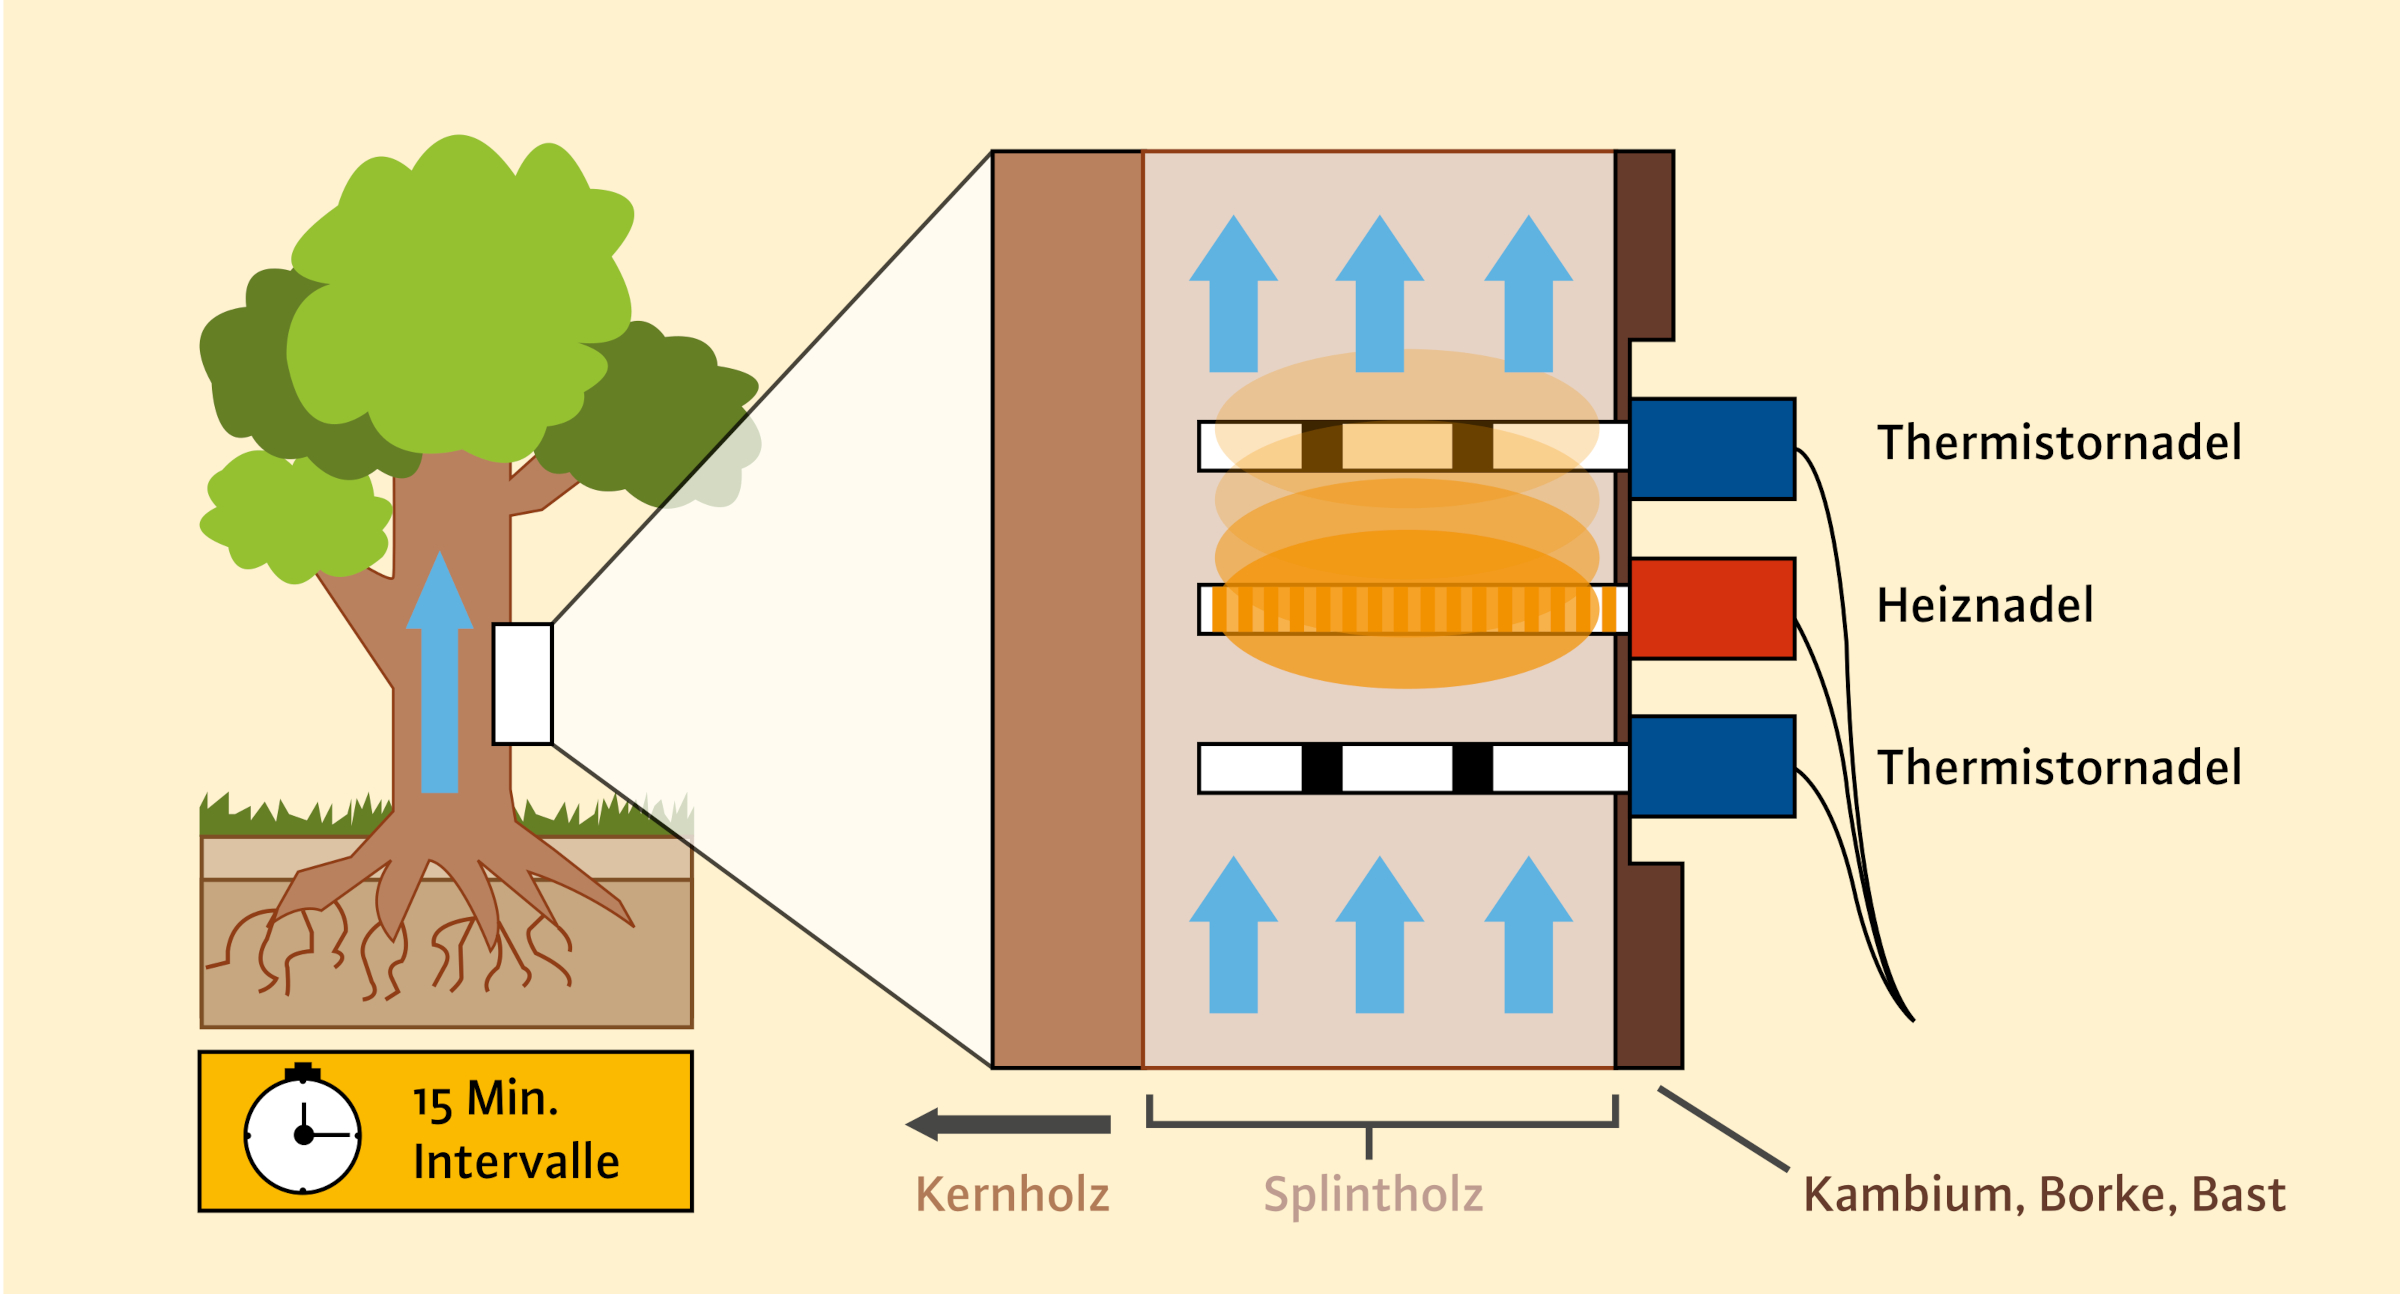
Abb. 3: Mithilfe der HRM-Sensoren wird die Ausbreitungsgeschwindigkeit eines Wärmeimpulses entlang des Saftflusses gemessen.
Messkonzept und Datenerhebung
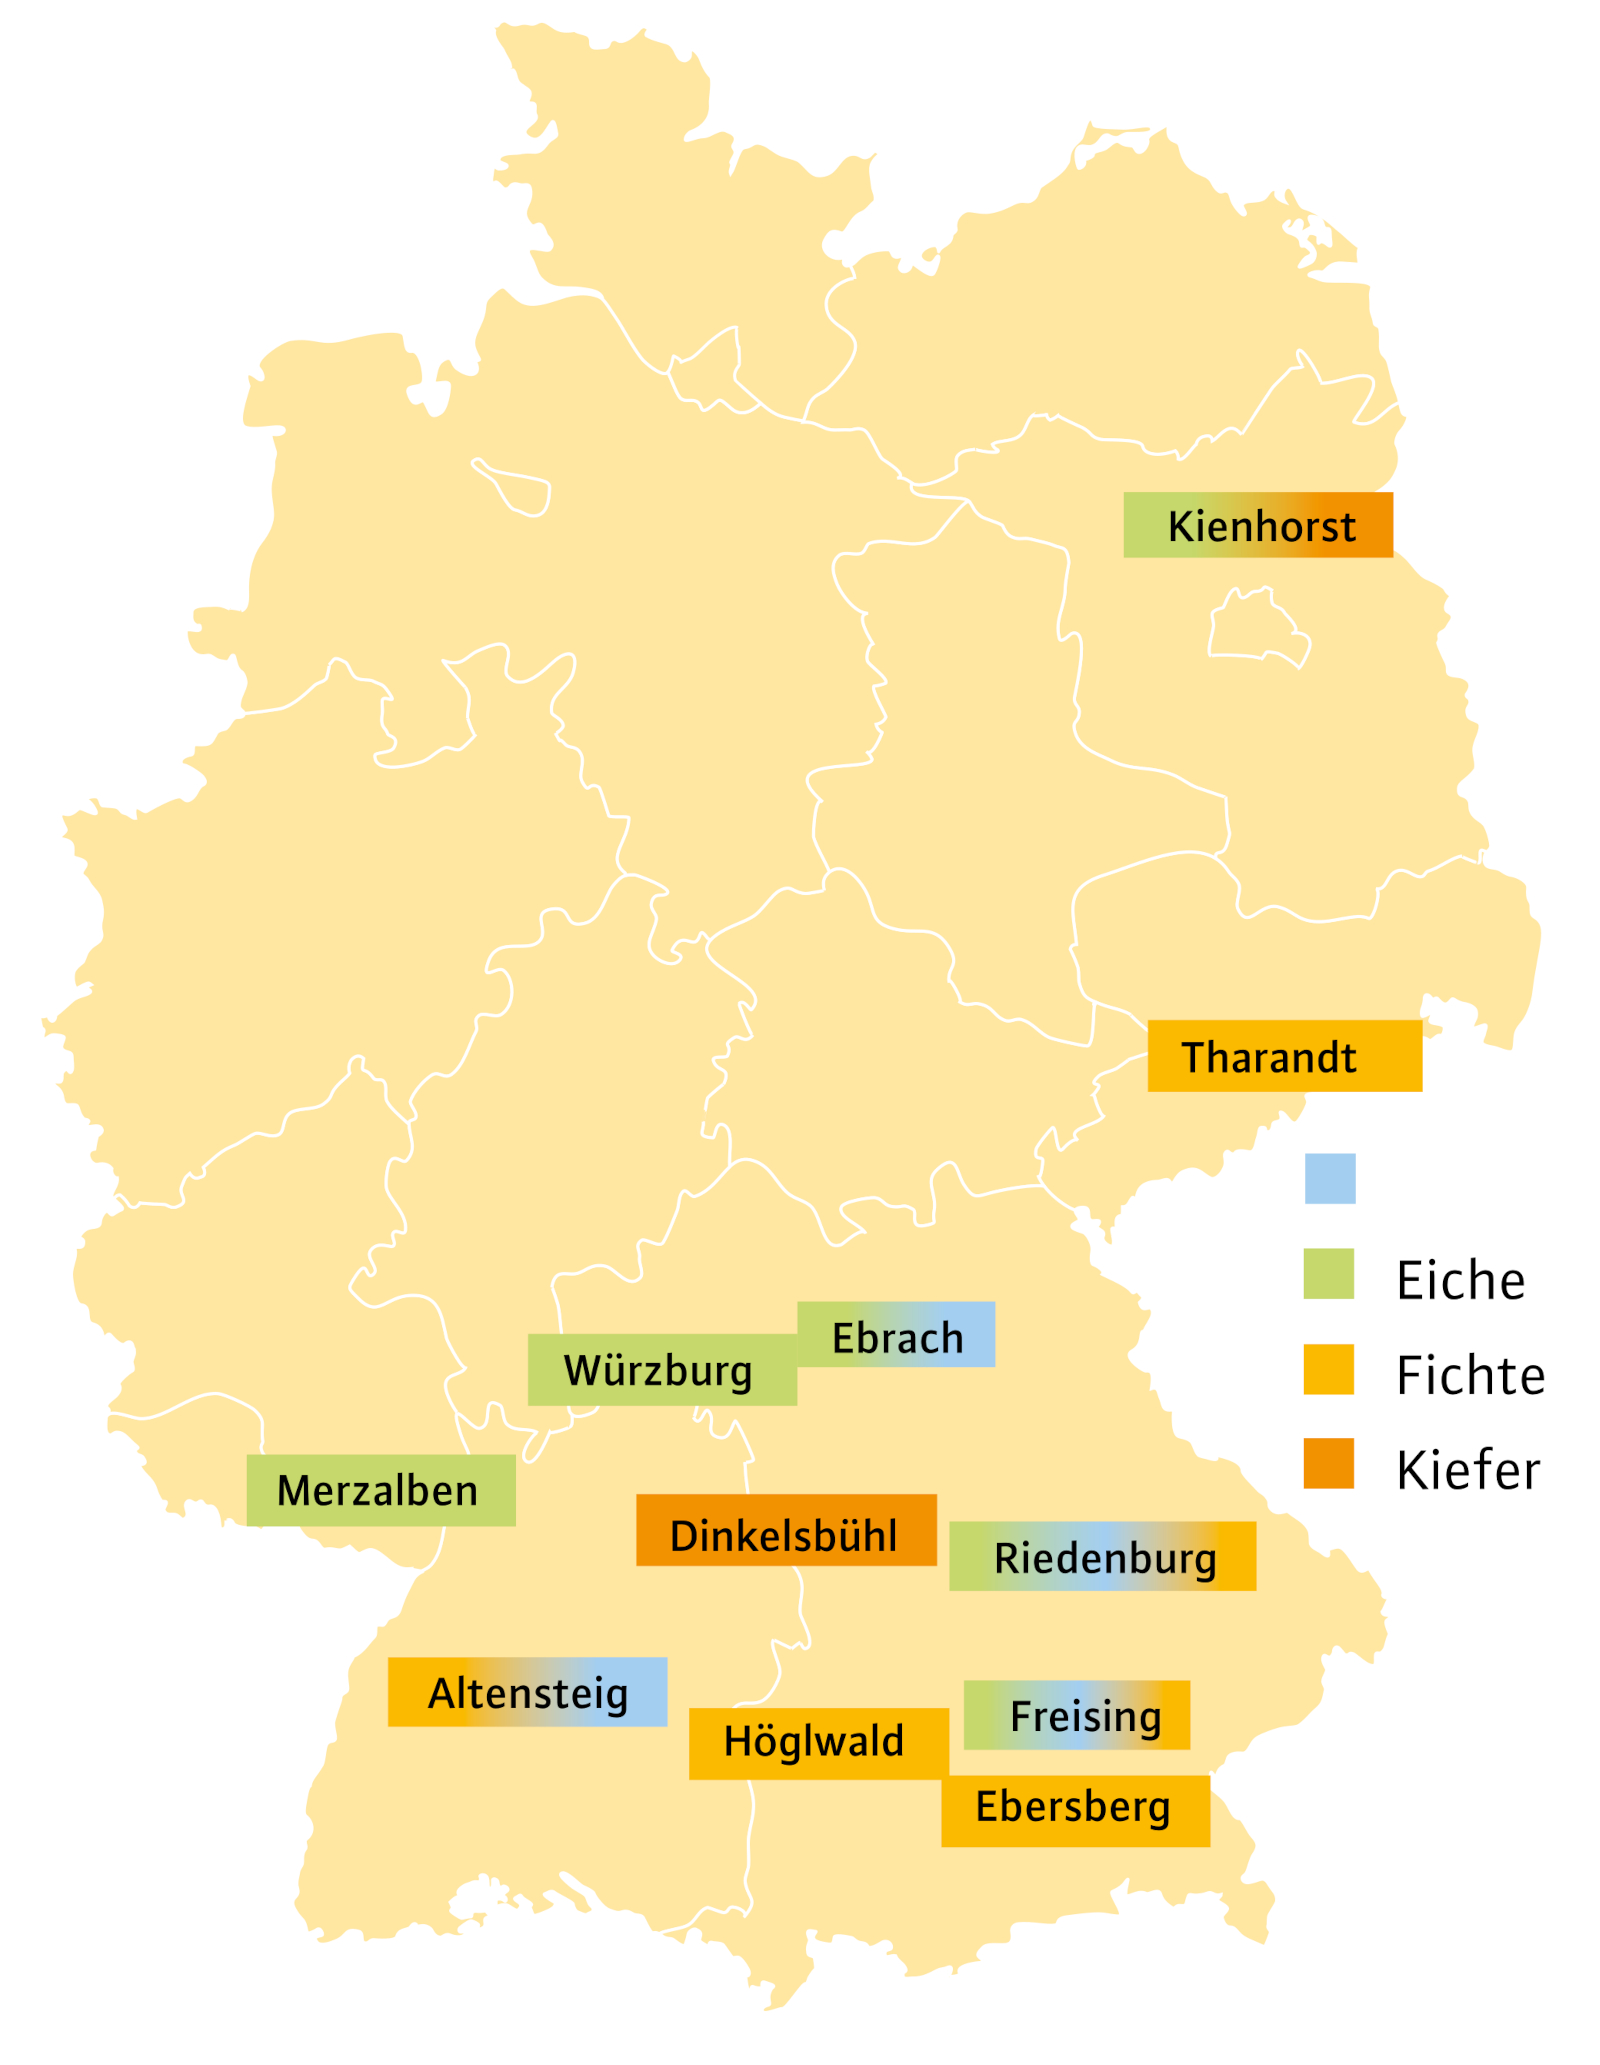
Abb. 4: Übersicht der im Projekt untersuchten Standorte mit den jeweiligen Baumarten.
Für die Saftflussmessungen wurden auf jeder Versuchsfläche fünf bis sechs Bäume auf etwa 2.500 m2 ausgewählt, die einen repräsentativen Querschnitt der dort vorhandenen Brusthöhendurchmesser (BHD) abbilden. Anhand einer Sensitivitätsanalyse stellten wir fest, dass die Sonden am besten auf viele repräsentative Bäume verteilt werden sollten, anstatt mehrere an einem Baum zu installieren. Dadurch werden Variationen zwischen den Bäumen einer Fläche besser erfasst, welche die Aussagekraft des Monitorings für den Bestand stärken.
Zur Erfassung des gesamten Wasserverbrauchs eines Baumes wurden die gemessenen Saftflussgeschwindigkeiten mit der Splintholzfläche des jeweiligen Baumes verrechnet. Dafür wurde von jedem Baum anhand einer Bohrkernprobe die Splintholzfläche ermittelt. Zur Unterstützung der praktischen Umsetzung der Saftflussmessungen wurde ein technischer Leitfaden in Form einer Handlungsempfehlung entwickelt und auf ResearchGate veröffentlicht. Ein Überblick der untersuchten Standorte sowie der zugehörigen Baumarten ist in Abbildung 4 zu sehen.
Variabilität zwischen den Messbäumen
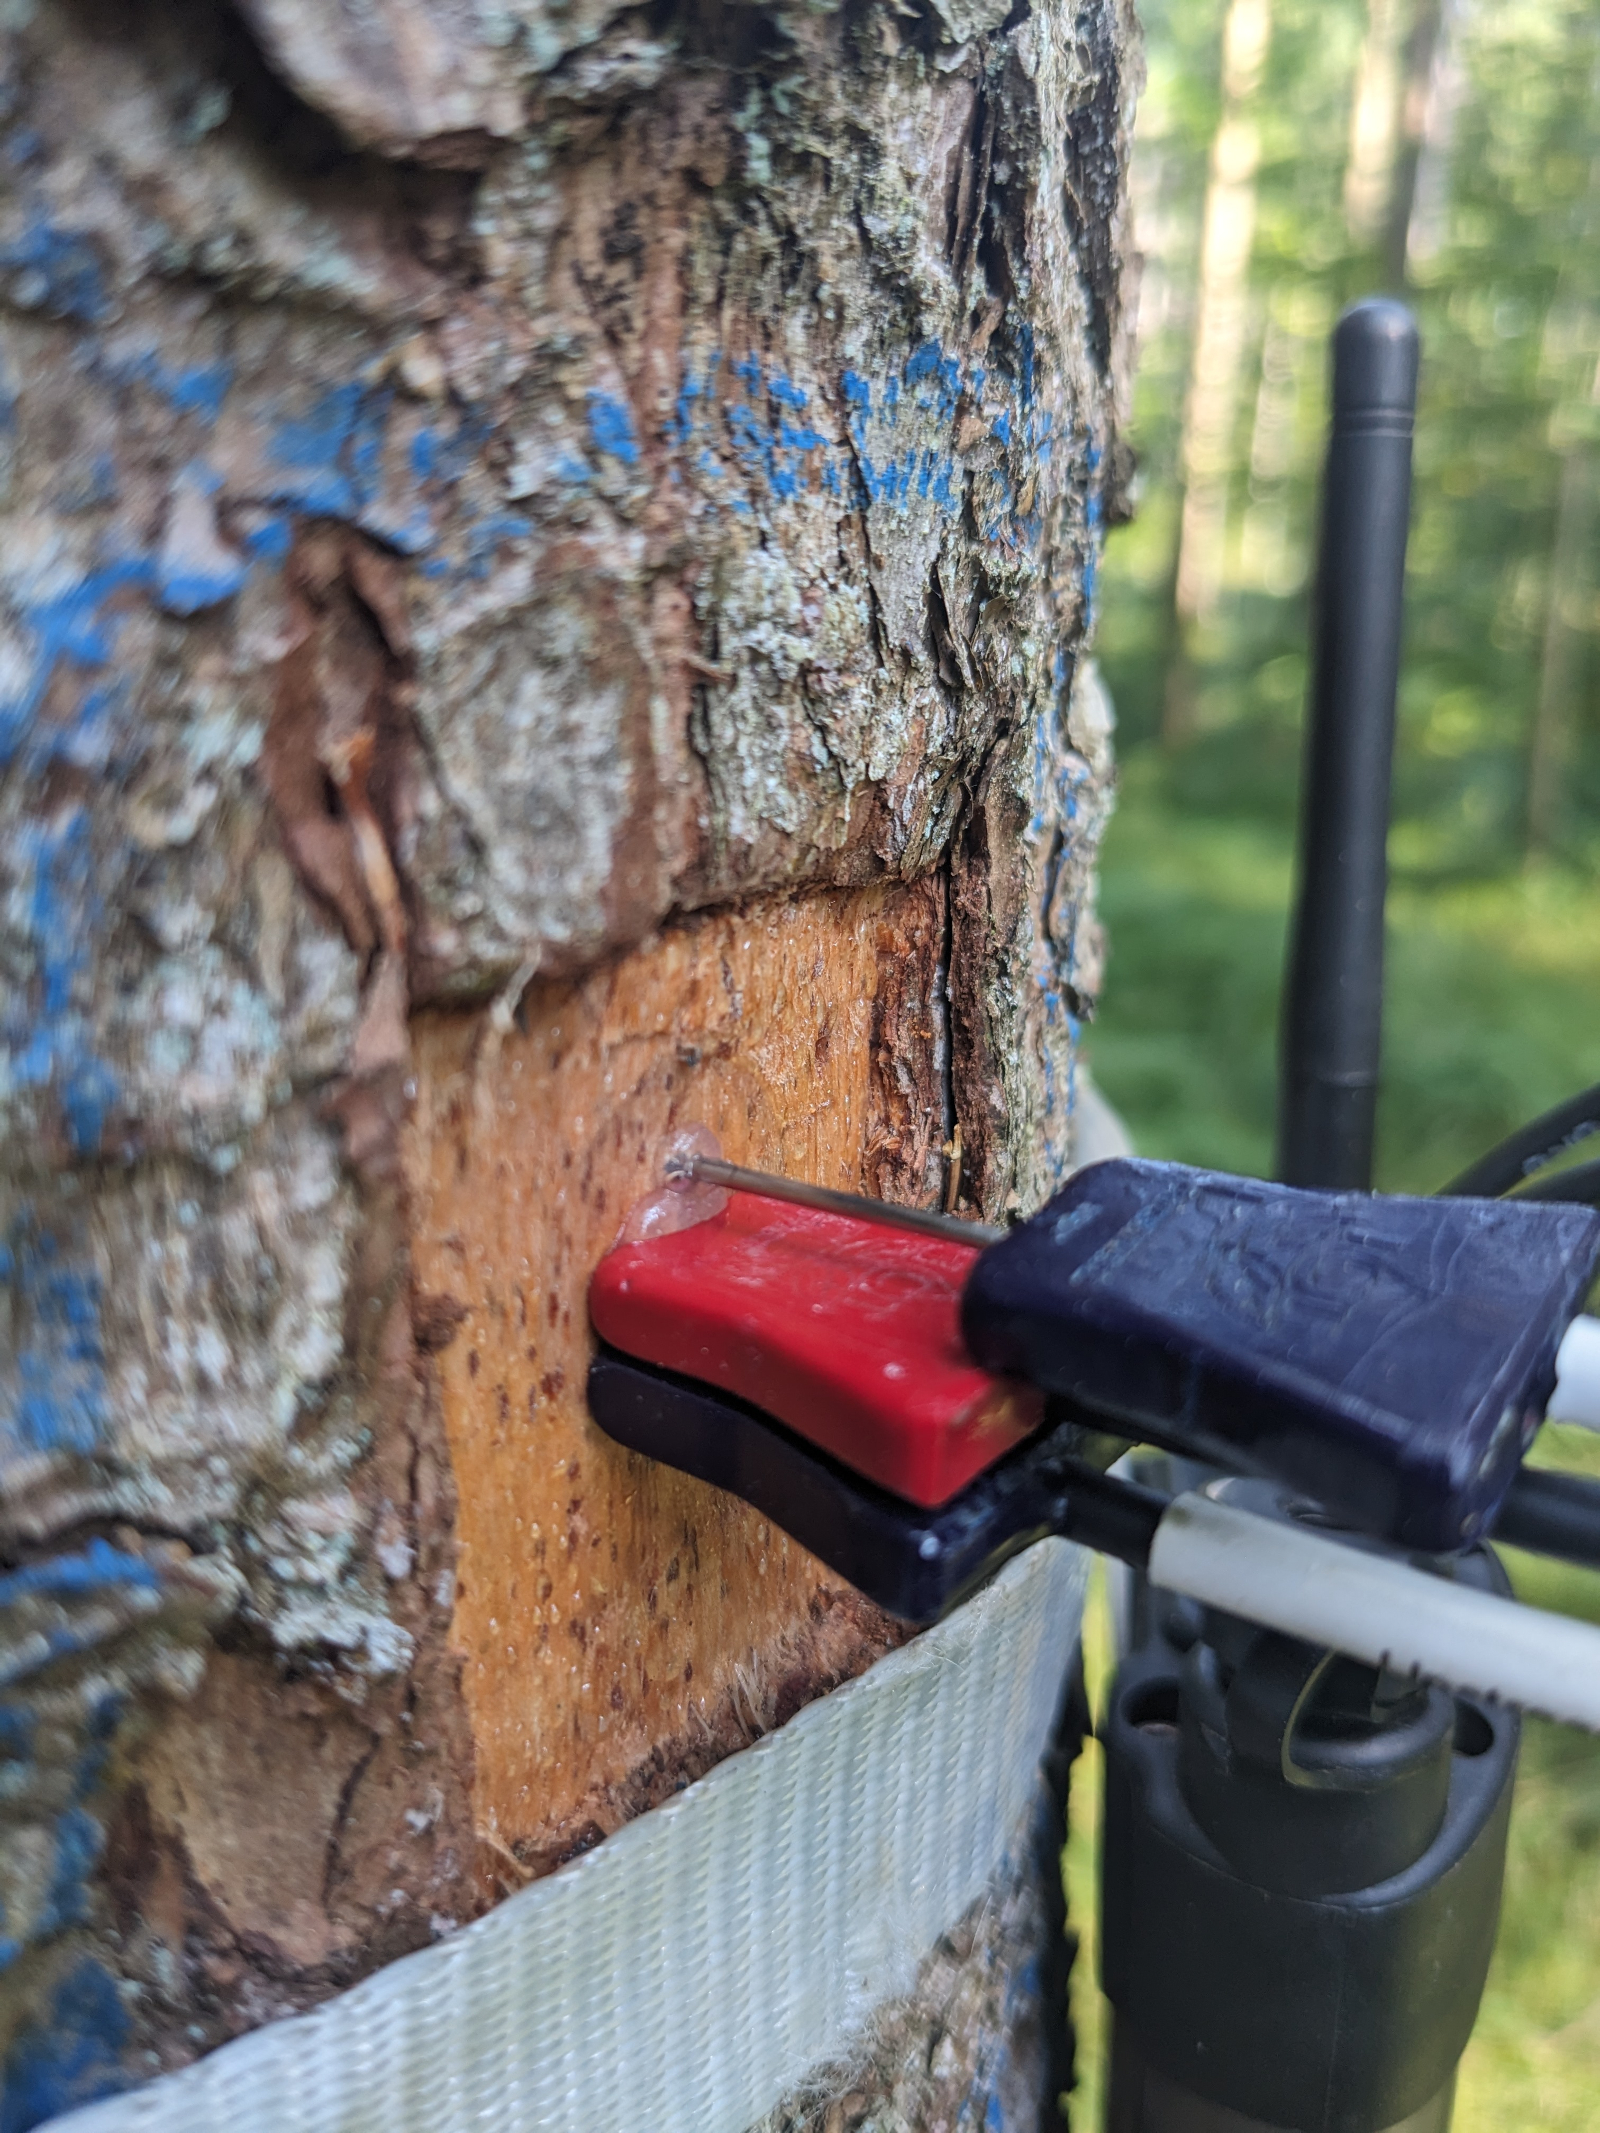
Abb. 5: Die präzise Installation der Thermistornadeln ist entscheidend für exakte Messergebnisse. Foto: Stephan Rimmele
Wieso werden Saftflussmessungen an mehreren Bäumen einer Fläche durchgeführt? Dies ist notwendig, um die Variabilität innerhalb eines Bestandes zu erfassen. Inwiefern sich der Wassertransport zwischen den Bäumen unterscheiden kann, ist in Abbildung 6 anhand eines neuntägigen Messausschnitts dargestellt: Für die Saftflussmessungen in einem Fichtenbestand in Riedenburg wurden fünf repräsentative Bäume mit einem BHD zwischen 26 und 51 cm ausgewählt. Obwohl die zeitlichen Verläufe ähnlich sind, unterscheiden sich die transportierten Wassermengen deutlich in Abhängigkeit vom BHD. Da die Splintholzfläche maßgeblich den Saftfluss bestimmt, verbrauchen dickere Bäume auch mehr Wasser. Um die Aussagekraft der Saftflussmessungen für den Bestand zu stärken, sollte daher ein repräsentativer Querschnitt der vorhandenen BHDs erfasst werden. In diesem sollten sich sowohl vorherrschende und herrschende, als auch gering mitherrschende und beherrschte Bäume befinden. Gleichzeitig sollten insbesondere die mächtigsten Bäume miteinbezogen werden, da deren Variabilität die Gesamttranspiration besonders stark beeinflusst.
Kopplung zwischen Transpiration und Photosyntheseleistung
In Abbildung 6 zeigen die Saftflüsse der Bäume sehr ähnliche zeitliche Dynamiken: In den ersten Tagen steigt der Wasserverbrauch tagsüber deutlich an und erreicht am frühen Nachmittag sein Maximum, während er nachts nahezu auf null zurückgeht. Dieser Verlauf spiegelt die enge Kopplung von Photosynthese und Transpiration wider. Mit zunehmender Sonneneinstrahlung öffnen sich die Stomata, wodurch der Gasaustausch und der Wasserverbrauch durch die Verdunstung steigen. Abends, wenn das Licht nachlässt, schließen sich die Stomata wieder und der Saftfluss nimmt ab. Die nächtlichen niedrigen Saftflüsse dienen zum Auffüllen der tagsüber beanspruchten Wasserreserven im Baumstamm. Interessanterweise war am 16. Mai tagsüber kaum Saftfluss zu beobachten. Da an diesem Tag deutlich mehr Niederschlag fiel und die Luftfeuchtigkeit erhöht war, verdunstete weniger Wasser an der Nadeloberfläche. Durch die geringere Transpirationsrate nahm auch der Saftfluss im Baum ab. Zudem wurden die Wasserreserven im Baum vollständig aufgefüllt, sodass in der Nacht darauf der Saftfluss erstmals seit Tagen ganz auf null sank.
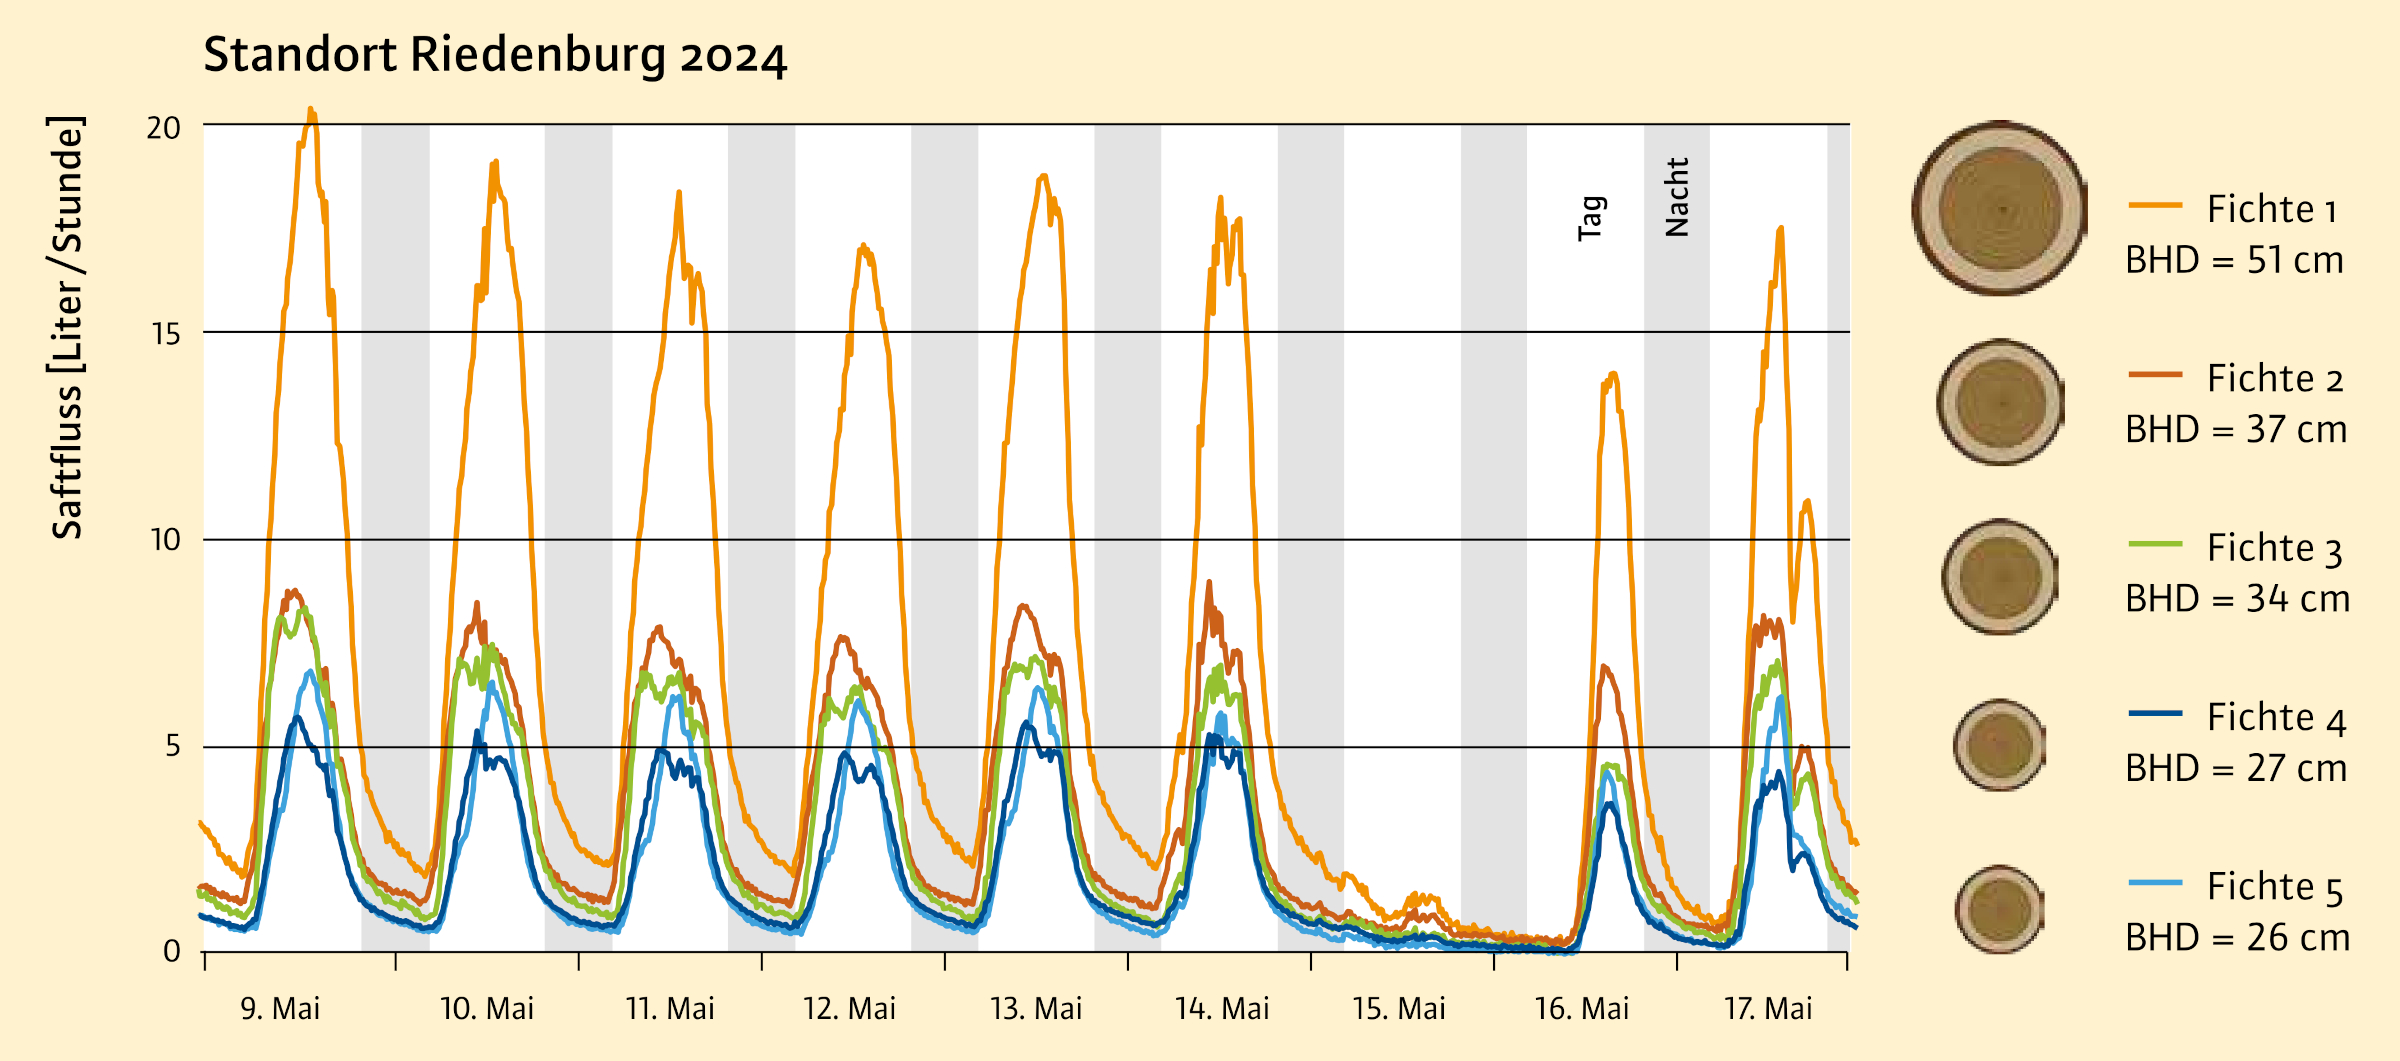
Abb. 6: Die Wassermenge des Saftflusses ist maßgeblich von der Splintholzfläche abhängig.
Überleben bei Trockenstress: Wie wird Wasser effizient genutzt?
Die enge Kopplung von Transpiration und Photosynthese über die Stomata erfordert eine präzise Koordination beider Prozesse. Besonders unter Trockenstress gerät dabei der Baum in eine physiologische Gratwanderung: bleiben die Stomata bei Wassermangel zu lange geöffnet, können Embolien im Xylemgewebe entstehen, was eine Unterbrechung des Wassertransports und Schäden im Gewebe zur Folge hat. Werden die Stomata hingegen über eine längere Zeit geschlossen, wird kein CO2 für die Energieversorgung und das Wachstum aufgenommen. In diesem Spannungsfeld entwickelten Baumarten unterschiedliche Wassernutzungsstrategien, durch die sie Trockenstress zu überstehen versuchen.
Isohydrische Bäume wie zum Beispiel die Waldkiefer und die gemeine Fichte regulieren ihre Stomata sehr streng und schließen sie frühzeitig nahezu vollständig, sobald Wassermangel droht. Auf diese Weise halten sie ihren Wasserstatus stabil und vermeiden hydraulische Schäden, riskieren jedoch einen Kohlenhydratmangel. Dem gegenüber stehen anisohydrische Arten wie beispielsweise Traubeneiche und Rotbuche, die ihre Stomata länger offen lassen. Sie sichern dadurch die Photosynthese, müssen aber größere Schwankungen im Wasserpotential der leitenden Gewebe und ein höheres Risiko für Trockenstress tolerieren. Um diesem standzuhalten, verfügen sie über robustere Blattstrukturen, eine höhere Holzdichte und mehr Leitungsbahnen im Blatt. Dadurch wird der Wasserstransport stabilisiert und das Risiko von Embolien reduziert, allerdings unter hohem Kohlenstoffaufwand.
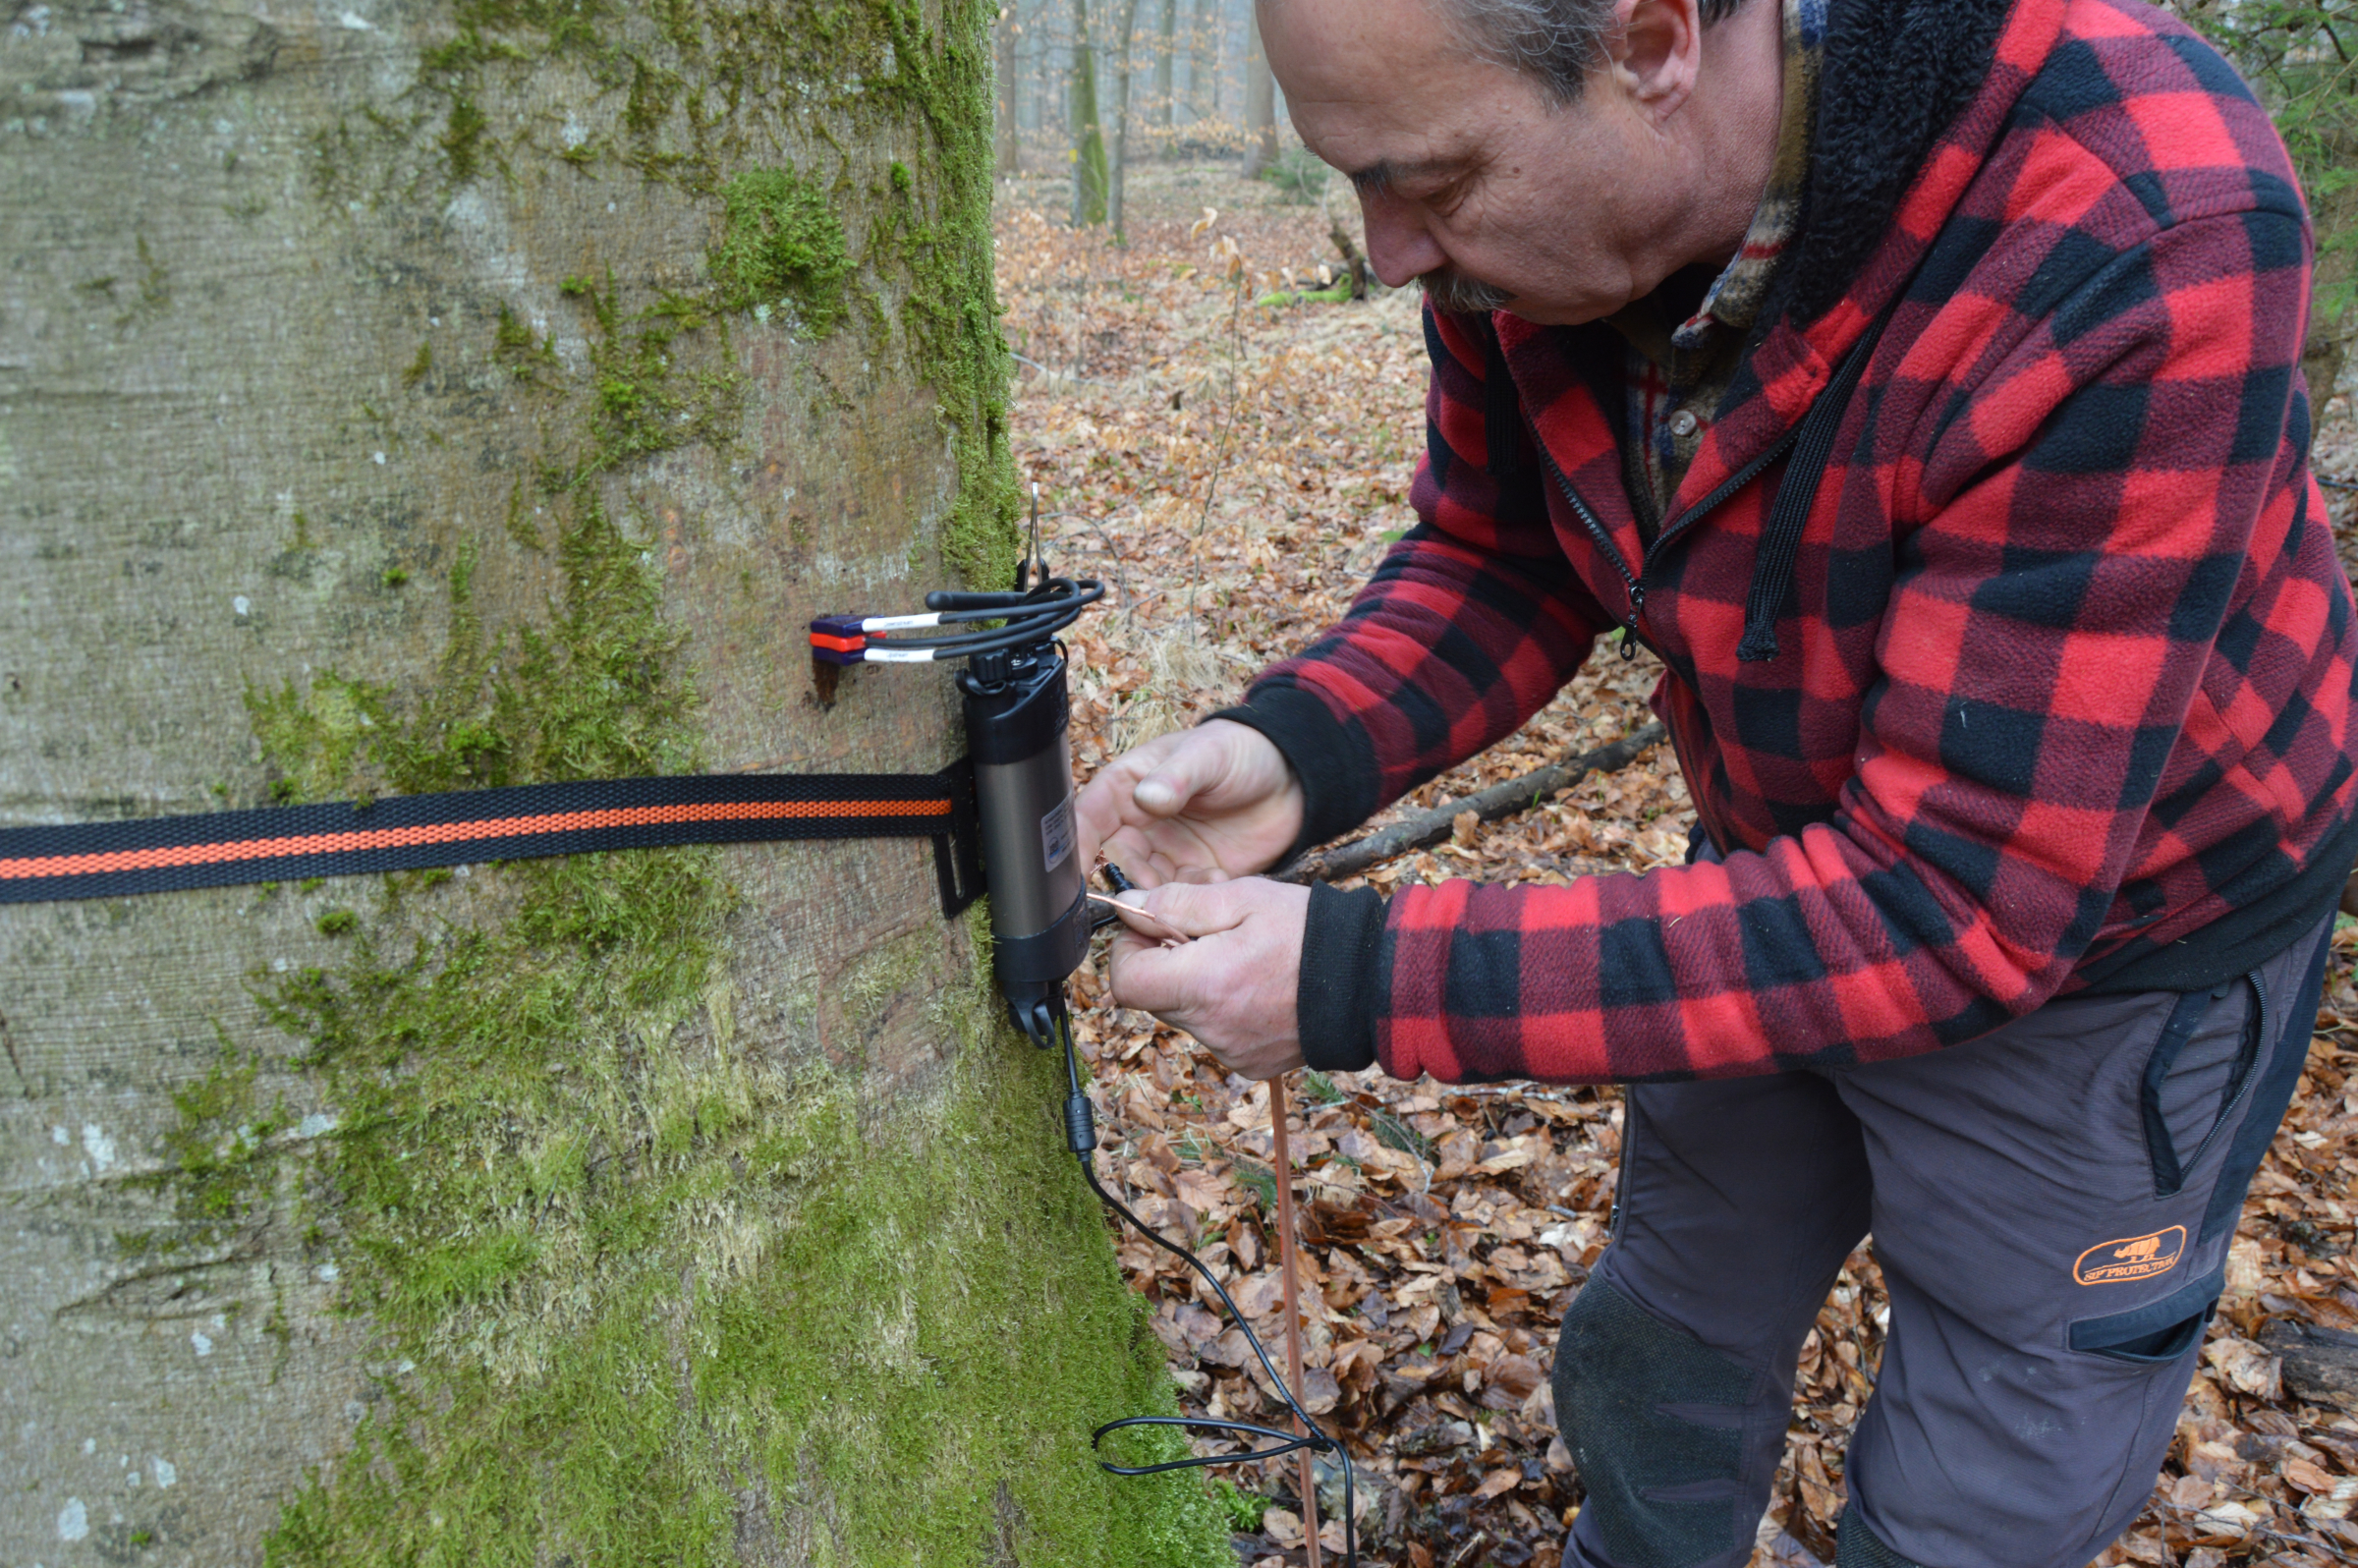
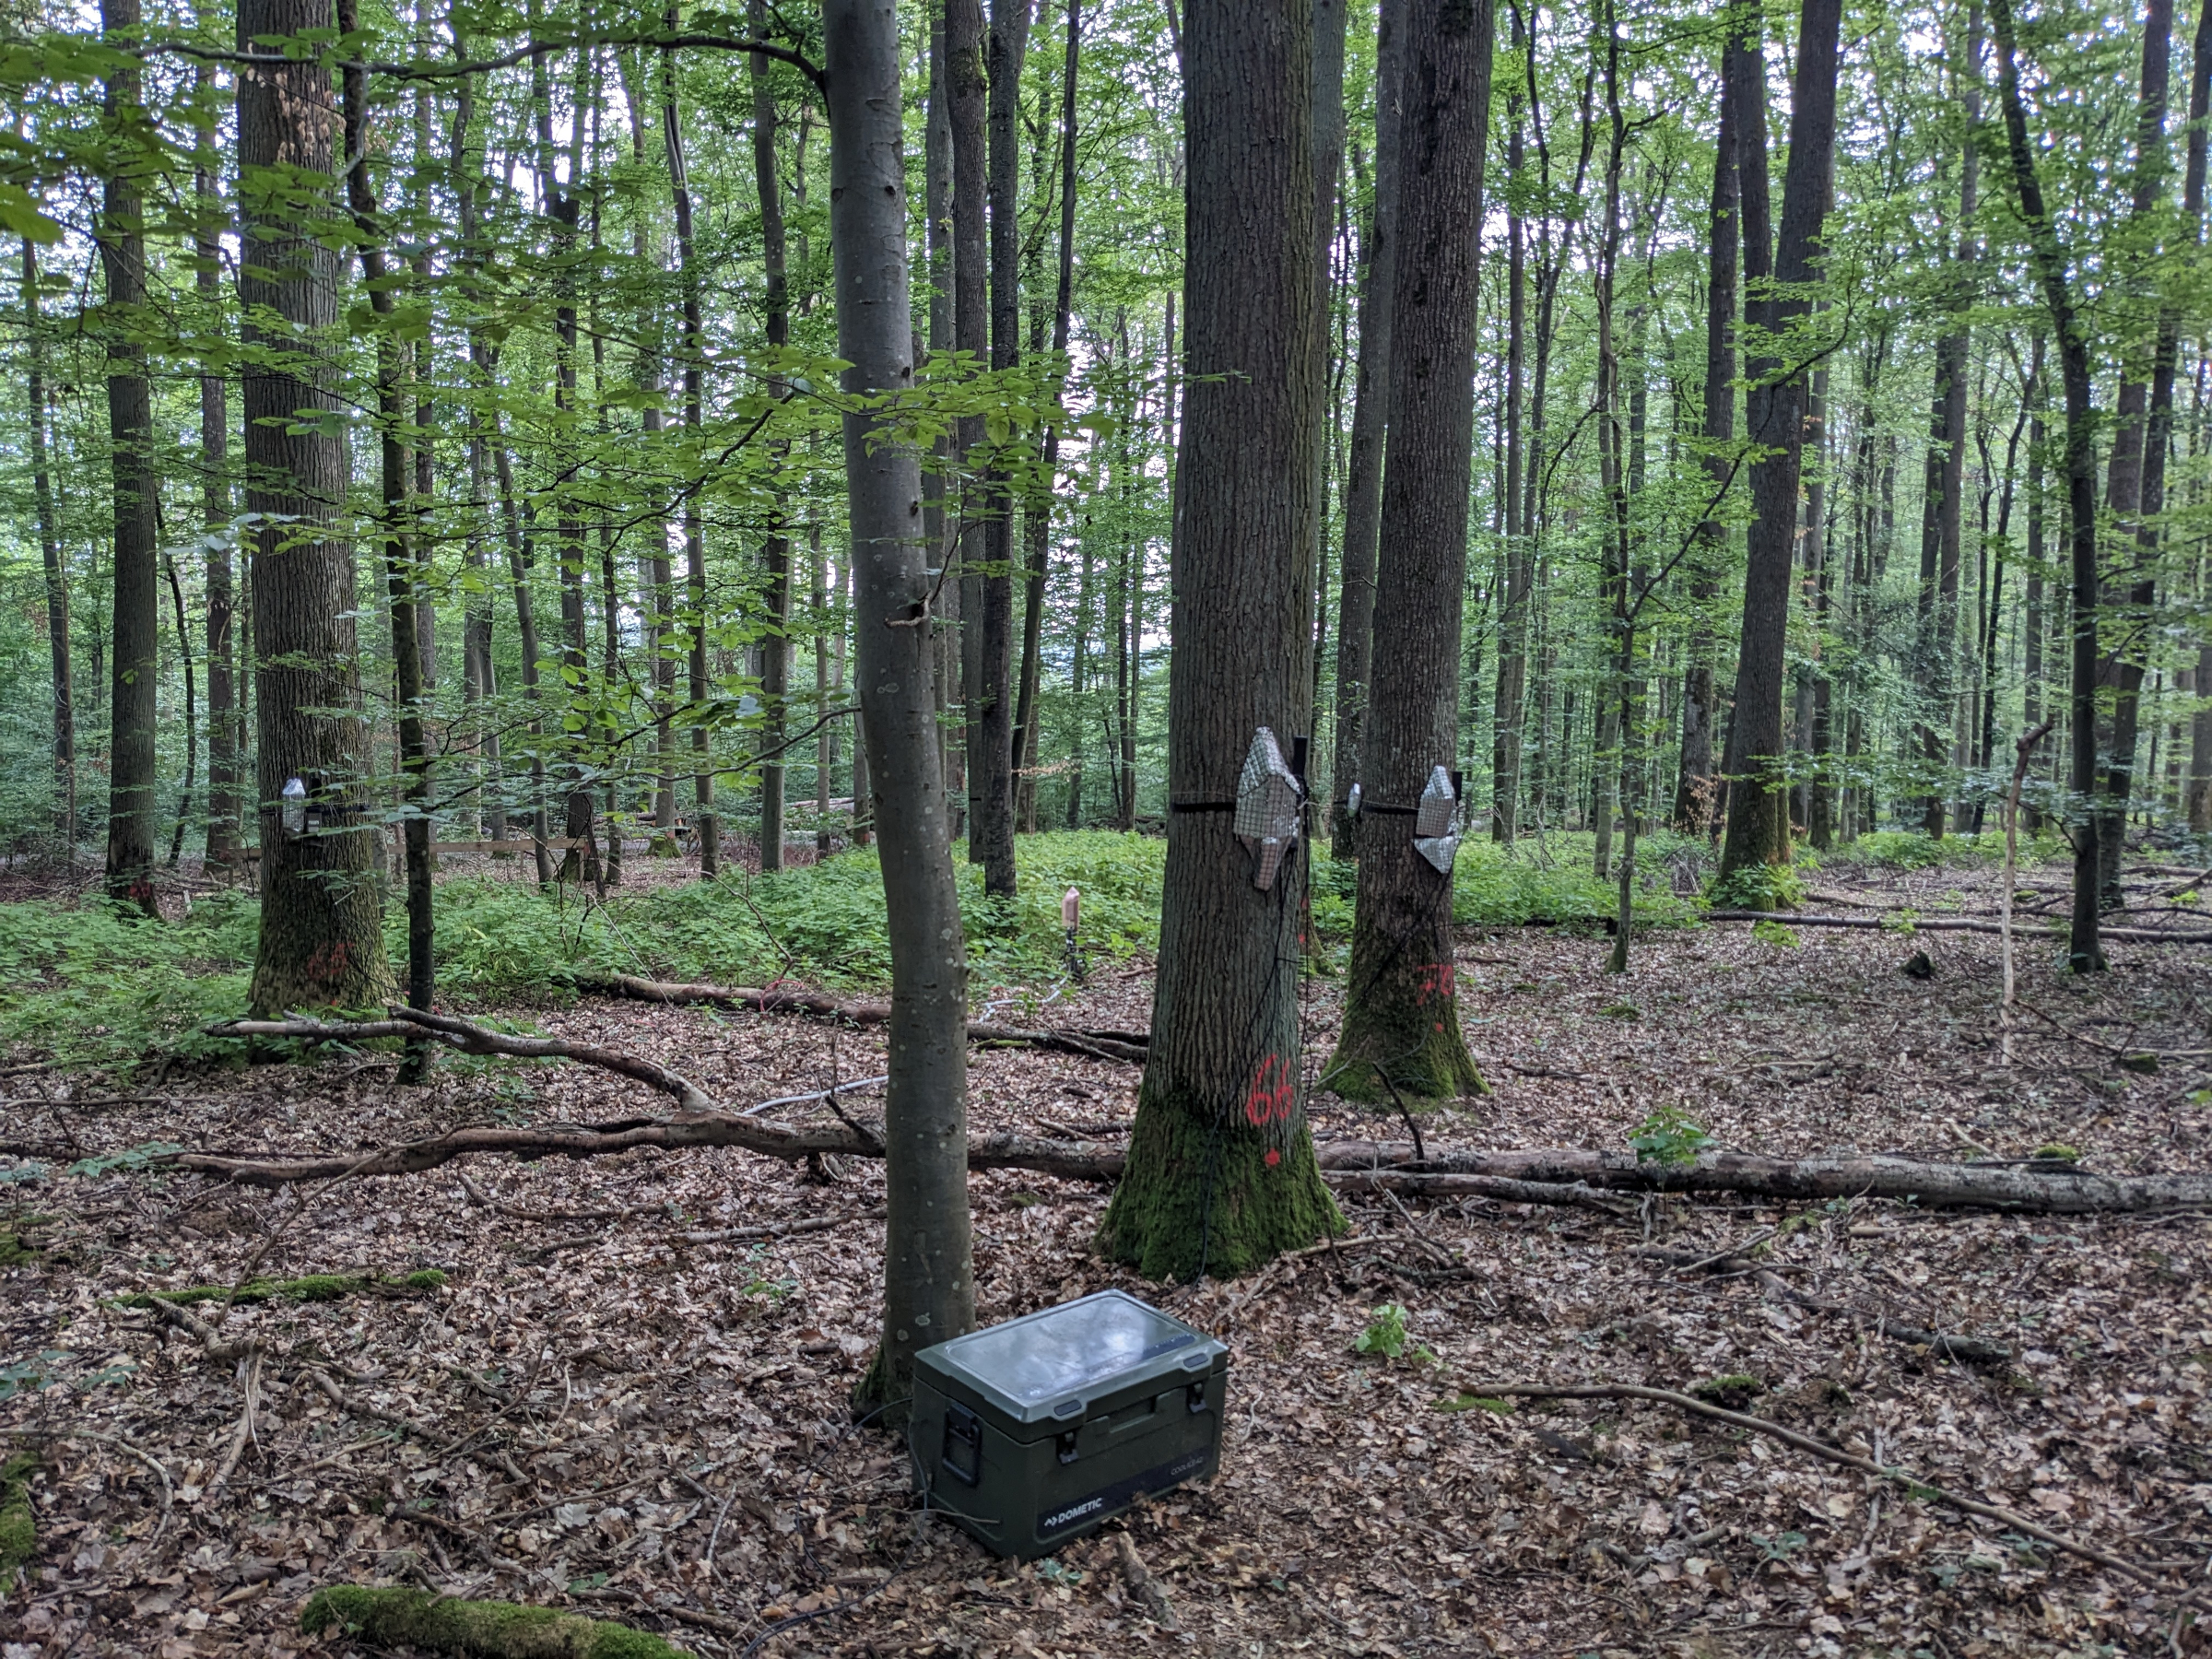
Abb. 7a und b: Nach der sorgfältigen Installation der Saftflusssensoren am Baum wurden diese mit einem Strahlungs- und Verdunstungsschutz am Baum gesichert. Fotos: Stephan Raspe (LWF), Carina Mayer (LWF)
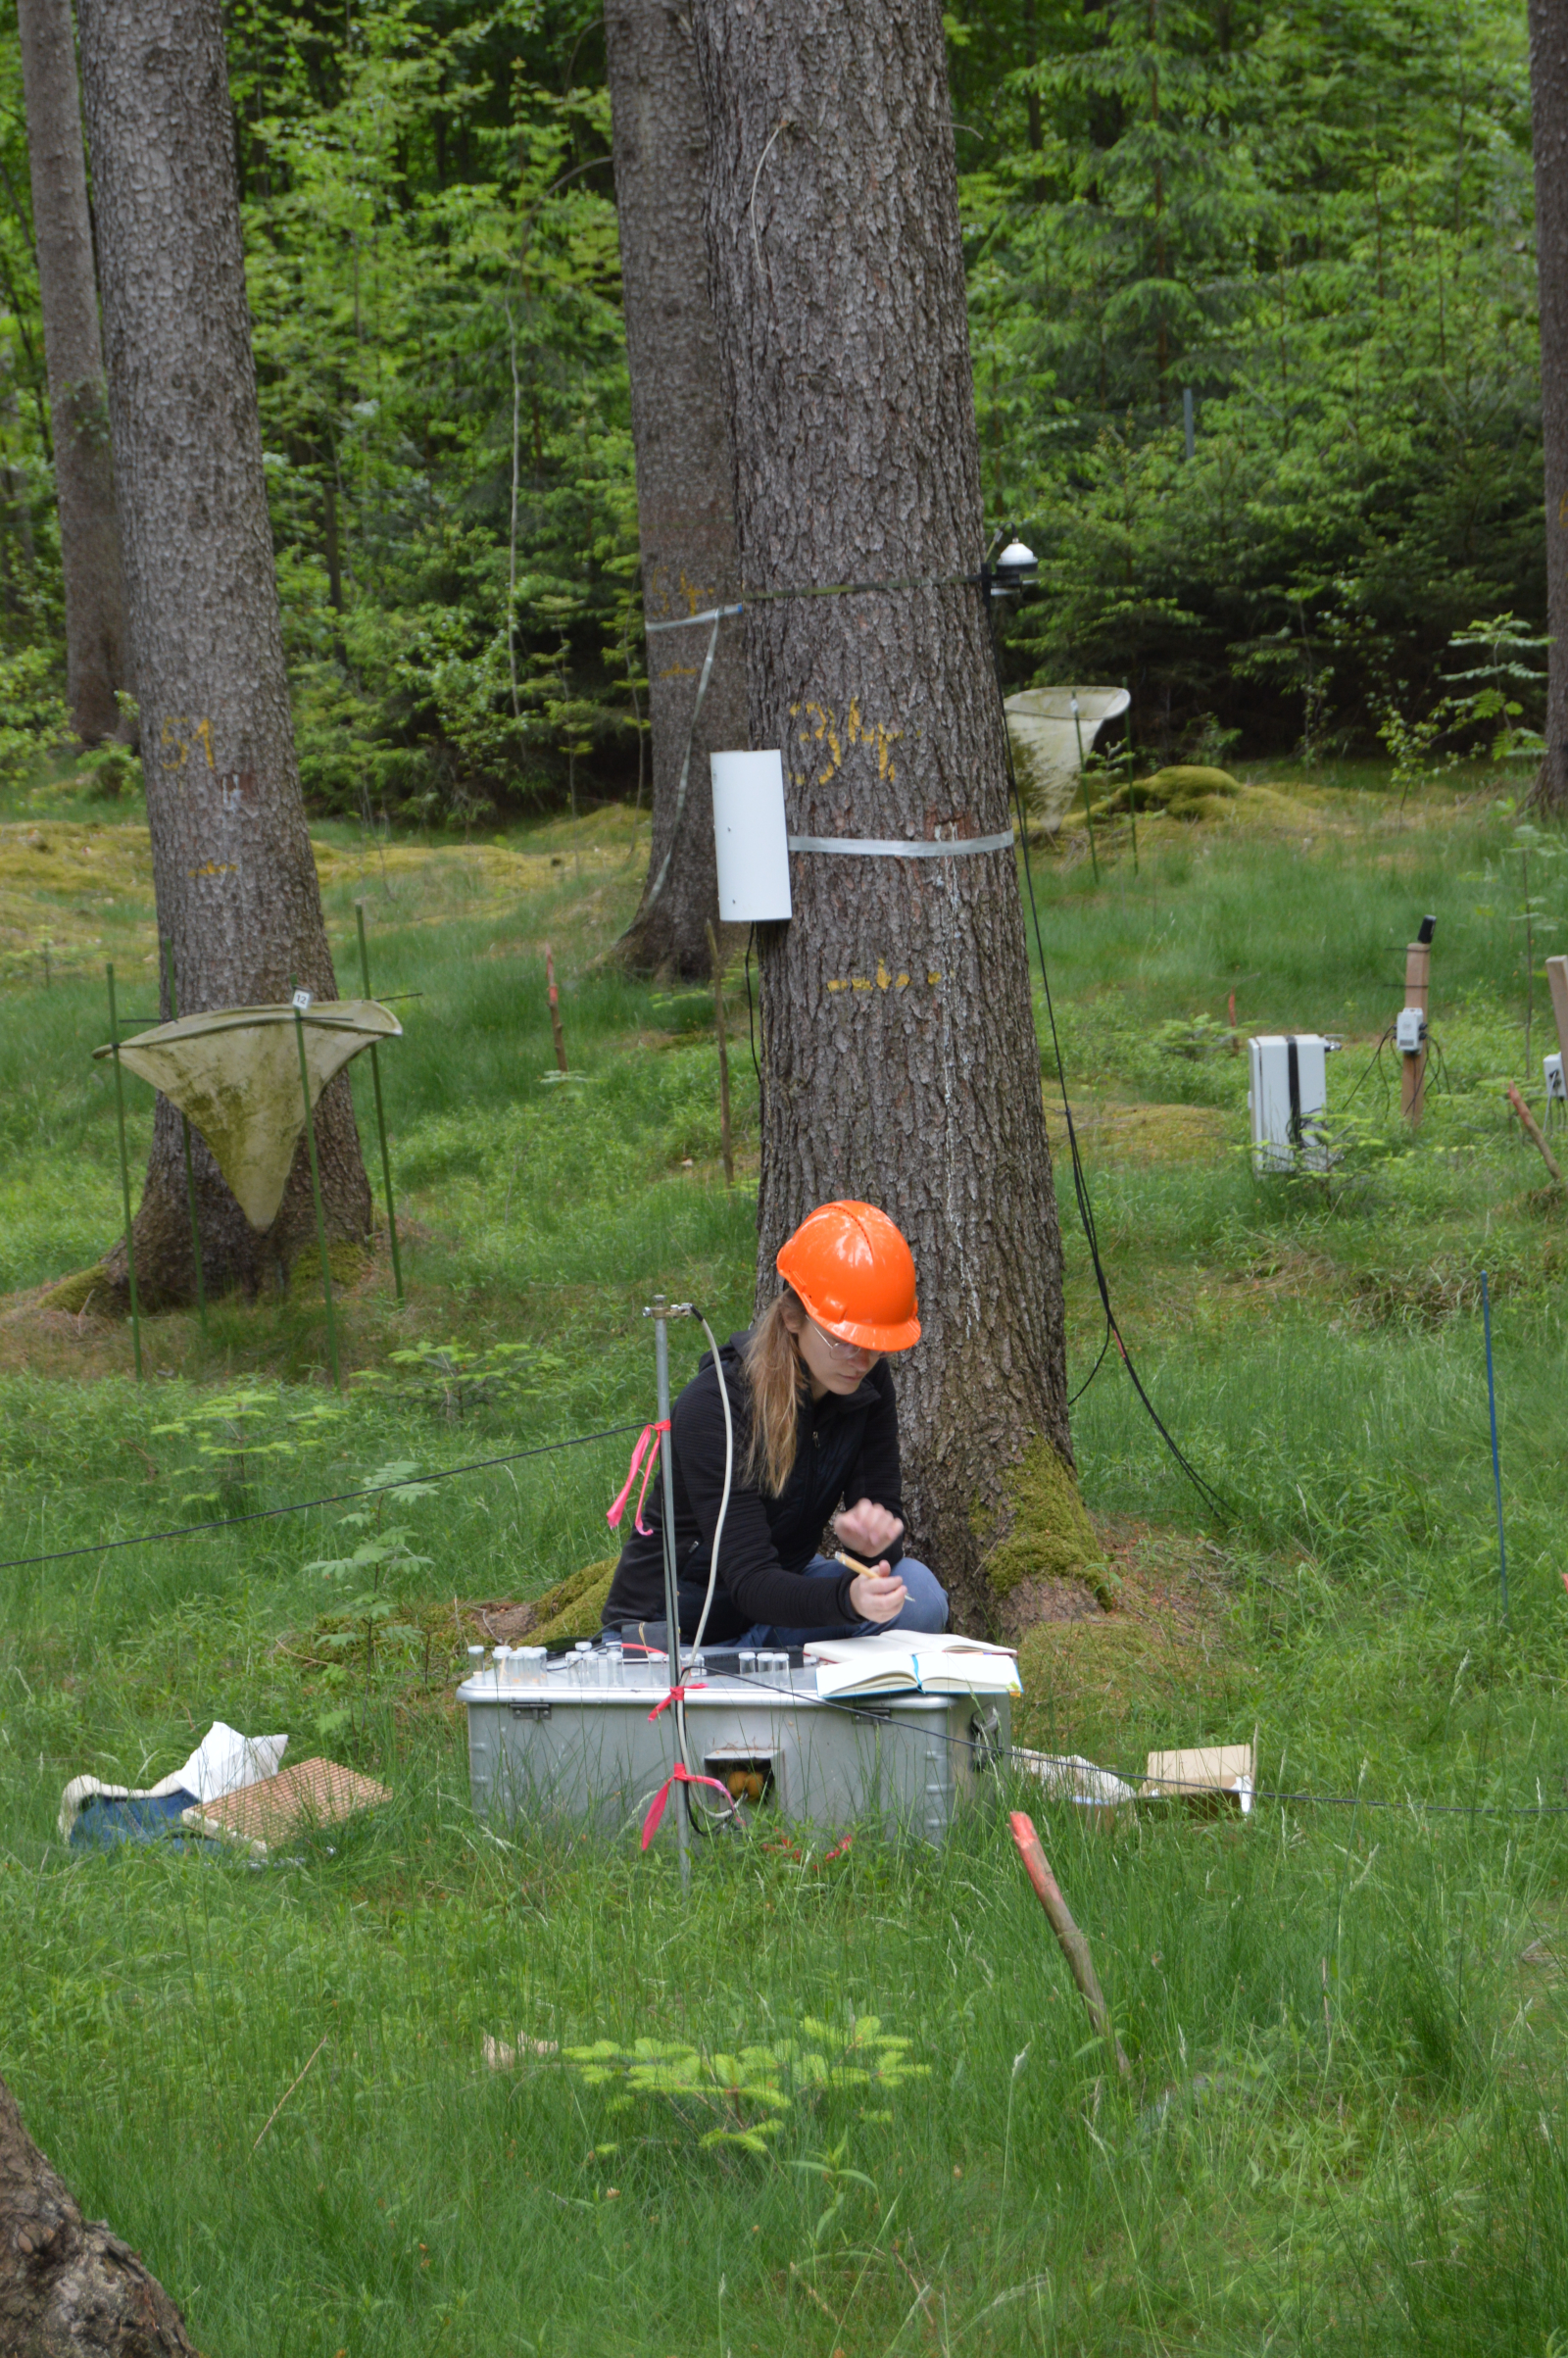
Abb. 8: Die Bestimmung der Splintholzfläche erfolgte durch Lichttransmissionsmessung direkt im Gelände. Foto: Stephan Raspe (LWF)
Transpiration von Kiefern und Eichen im Jahresverlauf
Auch anhand der Saftflussmessungen können unterschiedliche Wassernutzungsstrategien zwischen Baumarten beobachtet werden. Für einen Vergleich zwischen Waldkiefern und Traubeneichen wurden zwei Bestände in Kienhorst (Schorfheide) unter gleichen klimatischen Bedingungen ausgewählt. Auf Grundlage der erhobenen Saftflüsse und Grundflächenverteilung im Bestand wurde die jeweilige Gesamttranspiration der beiden Bestände ermittelt.
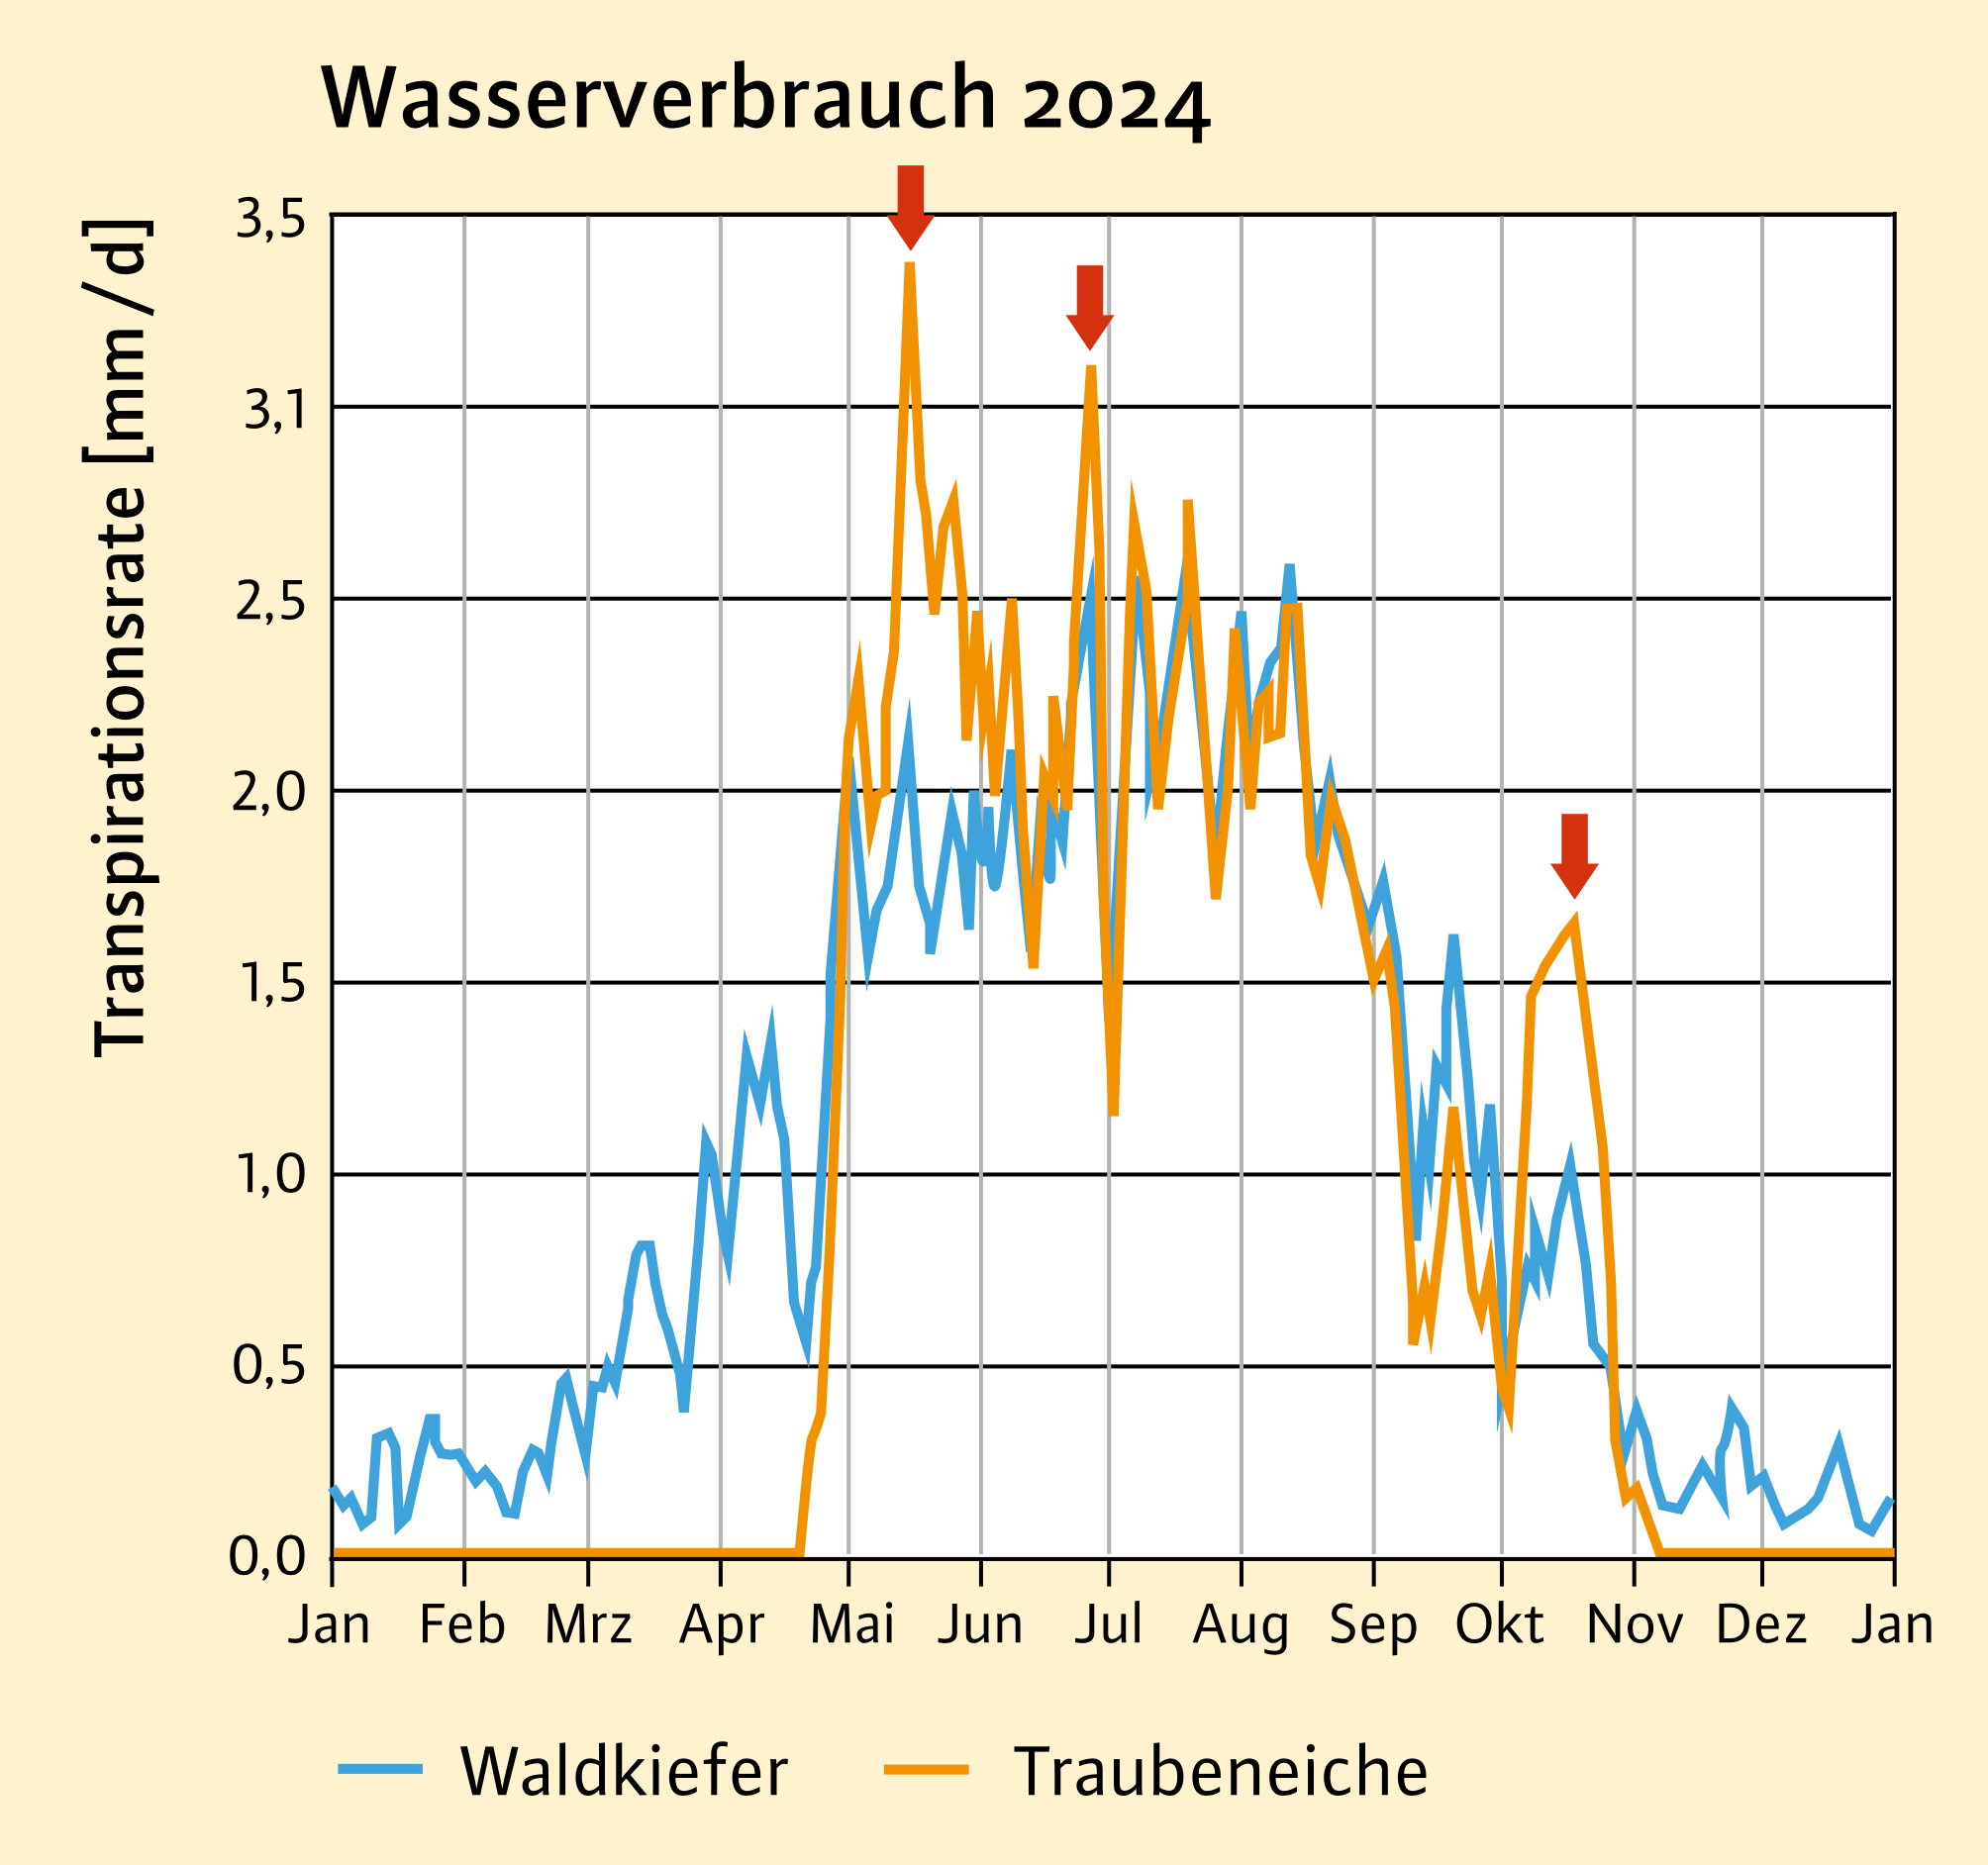
Abb. 9: An sonnigen, warmen Tagen (rote Pfeile) zeigt die Traubeneiche einen deutlich höheren Wasserverbrauch auf als die Waldkiefer.
Abbildung 9 zeigt zusammengefasst in Fünf-Tages-Mitteln den zeitlichen Jahresverlauf der Transpirationsraten für 2024. Dabei sind deutliche Unterschiede im Wasserverbrauch zwischen den Beständen zu sehen. Während die Waldkiefer als immergrüner Nadelbaum auch im Winter in geringem Umfang transpirieren kann, setzt die Traubeneiche die Transpiration erst mit dem Blattaustrieb ein und beendet sie im Herbst mit der Blattseneszenz. Zudem zeigt die Eiche an sonnigen, warmen Tagen einen deutlich höheren Wasserverbrauch als die Kiefer (rote Pfeile). Als anisohydrische Baumart hält die Traubeneiche ihre Stomata länger geöffnet, um CO2 für Photosynthese und Wachstum aufzunehmen. Dadurch riskiert sie die höheren Wasserverluste im Sommer. Die isohydrische Waldkiefer hingegen schließt ihre Stomata frühzeitig bei Trockenheit und verhindert dadurch Wassermangel. Zudem ist zu beachten, dass sich die Gesamtoberfläche der Nadeln bzw. Blätter zwischen den beiden Baumarten stark unterscheidet. Als Vergleichsgröße dient dabei häufig das Verhältnis zwischen der gesamten Blattoberfläche eines Baumes und der von ihm bedeckten Bodenfläche. Dieser Wert wird auch als Blattflächenindex bezeichnet. Die Traubeneiche besitzt laut Literatur eine 3,3- bis 6-fach größere Blattoberfläche im Vergleich zur Bodenfläche, die Waldkiefer dagegen nur eine um das 1,5- bis 3,5-Fache. Daher sind bei der Traubeneiche deutlich mehr Stomata in der Krone vorhanden, die im geöffneten Zustand eine höhere Transpirationsrate als die der Waldkiefer ermöglichen. Der Blattflächenindex ist daher eine wichtige Größe zur Charakterisierung der Bestände in der Wasserhaushaltsmodellierung.
Die Saftflussmessungen zeigen deutlich, wie stark sich der Wasserverbrauch sowohl zwischen einzelnen Bäumen als auch zwischen den verschiedenen Baumarten unterscheidet. Dadurch ermöglichen sie es, den tatsächlichen Wasserverbrauch der Bestände im zeitlichen Verlauf präzise nachzuvollziehen und Veränderungen besser einzuordnen. Die erhobenen Saftflussdaten sind dabei nicht nur für die einzelnen untersuchten Bestände interessant, sondern sie verbessern auch maßgeblich die Genauigkeit der Wasserhaushaltsmodelle. Anhand der neuen Erkenntnisse zum tatsächlichen Wasserverbrauch, den zeitlichen Dynamiken und Beginn sowie Ende der Vegetationsphase lassen sich nun die Wasserhaushaltsmodelle verfeinern und zuverlässiger auf andere Bestände übertragen.
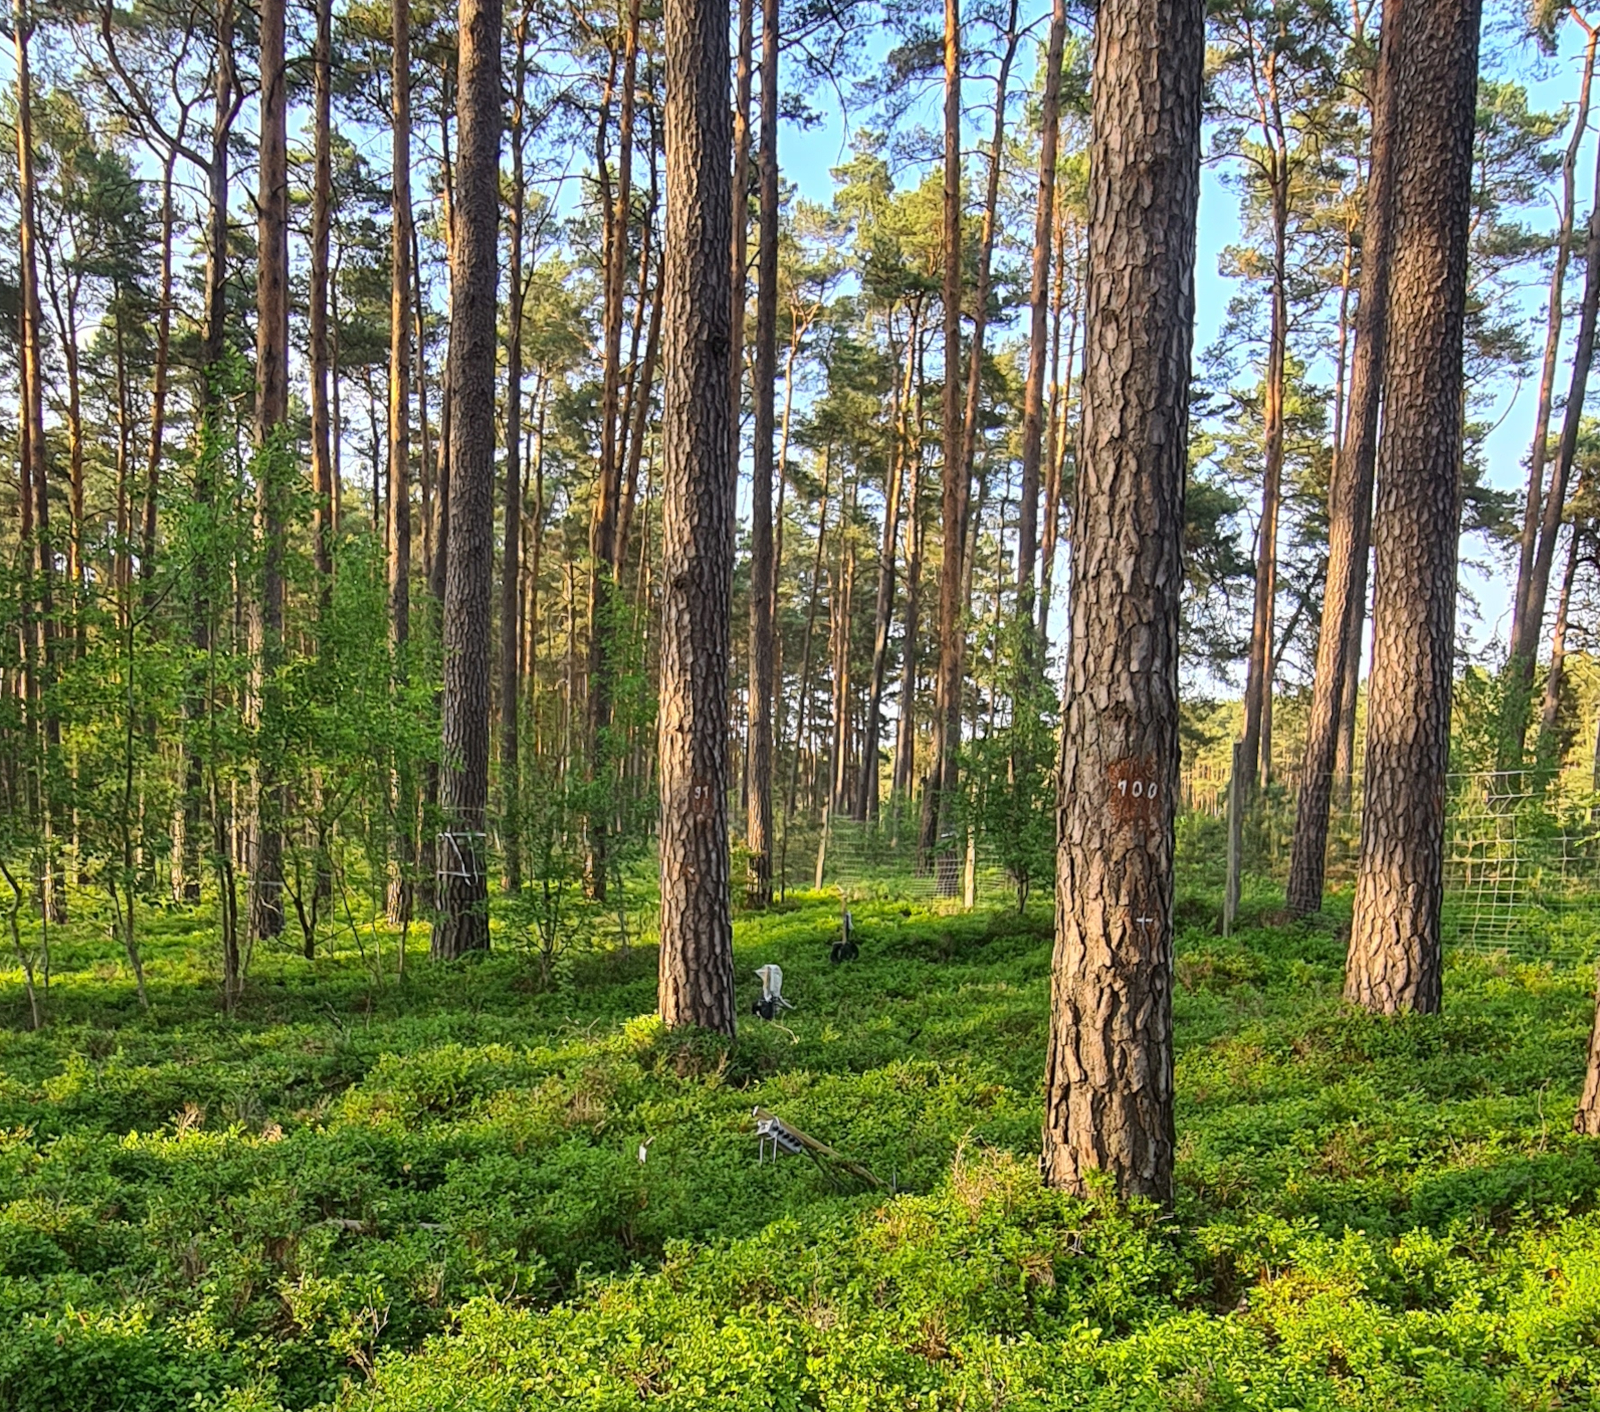
Abb. 10: Kieferbestand am Standort Kienhorst in der Schorfheide. Foto: Carina Mayer (LWF)
Zusammenfassung
Saftflussmessungen erfassen den Wasserverbrauch von einzelnen Bäumen und ermöglichen so die Bestimmung der Transpirationsrate ganzer Bestände. Dies trägt zur Optimierung von Wasserhaushaltsmodellen bei und hilft dadurch zukünftige Entwicklungen besser vorherzusagen. Durch das ganzjährige Monitoring mit 15 min Messungen werden zeitliche Dynamiken des Wasserverbrauchs erfasst und Anpassungen an Wetterereignisse sichtbar. Dies verdeutlicht den Zusammenhang von Wassertransport und Photosynthese und spiegelt dabei artspezifische Wassernutzungsstrategien wider. Damit schaffen Saftflussmessungen eine unverzichtbare Grundlage, um die Wasserbilanz von Wäldern realistisch abzubilden und ihre Widerstandsfähigkeit gegenüber klimatischen Extremereignissen besser einschätzen zu können.